

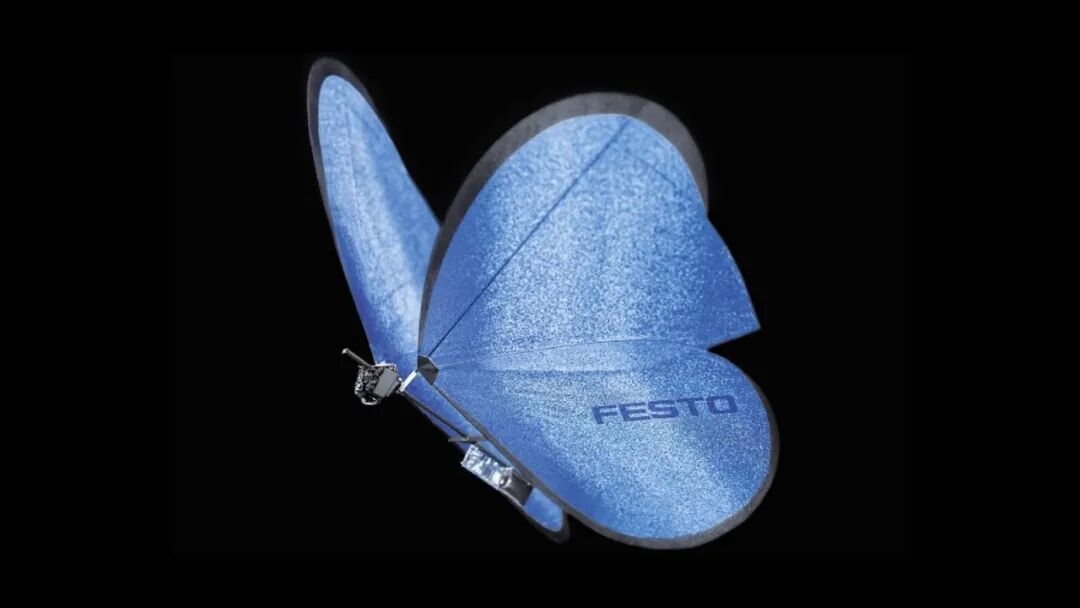
翅膀形态如何影响飞行性能是功能生物学和仿生机器人学的核心问题,然而,在活体生物中,这些关系难以分离。本文利用一种翅膀几何形状可调的机器人蝴蝶,结合运动捕捉和形态测量分析,系统地表征了形态与性能之间的关系。然后,我们运用深度强化学习搜索形态设计空间,并识别出针对空气动力学性能优化的翅膀设计。最终的设计使升力和推力性能分别提高了339%和46%。物理飞行测试验证了学习得到的形态,预测误差保持在7%以下。通过将受控机器人实验与机器学习相结合,该框架提供了一种在功能形态学中生成可检验假设的方法,同时指导仿生机器人的工程设计。
论文:Bio-inspired exploration of butterfly wing morphology guides deep reinforcement learning optimization of robotic flight
单位:北京科技大学、台湾淡江科技大学、香港理工大学、北京信息科技大学
发布日期:2026年
https://t.zsxq.com/ARalq
请索引第130篇论文
 |  |
一只48.3克的机器蝴蝶,被换上19对参数各异的翅膀,在14台红外相机下飞了95次;随后一个DQN智能体在神经网络代理模型里"走"了上百回合,给出两副人类想不到的翅膀——升力提升339%,推力提升46%,而且造出来真飞了,误差不到7%。这篇刚上线的 npj Robotics 论文,可能是近两年"AI+仿生"方向上最值得好好读的一篇方法论样本。
先说结论:这篇论文真正的主角不是那个339%,而是它把"生物学问题—机器人实验—统计推断—强化学习—物理验证"串成了一条完整闭环。对做AI+交叉学科的同学来说,这条链条本身比任何一个数字都值钱。下面我们一段一段拆。
一、一个让生物学家抓狂的老问题:翅膀形状到底管不管用?
蝴蝶为什么长着这样的翅膀?这是功能形态学(functional morphology)的经典命题。翅膀形状与飞行性能之间应当存在对应关系,否则进化不会如此精细地把不同物种"雕"成不同轮廓。可偏偏,这个对应关系至今没有被扎实建立起来。
原因说起来有点滑稽:研究对象不配合。你让一只活蝴蝶配合做空气动力学实验,本质上是在跟一个既不肯签知情同意书、也不按时上班、还会临场改飞行计划的被试谈判。同一只蝴蝶重复测,结果相关性都有限;换个体、换物种、换光照、换环境,数据就散成了蒲公英。
于是有人绕道:做等尺寸静态翅膀模型去吹风洞(Ortega Ancel 等,2017)。行为不可控的问题解决了,可静态模型又把真实飞行模式丢了——蝴蝶飞行时的机身振荡、翼-体非定常耦合,是它气动特性的核心部分,丢掉这些,测到的只是"一片不会飞的翅膀"。
这就形成了一个两难:要么"真"而不可控,要么"可控"而不真。本文的解法很干脆——造一只可控、可换翅膀、并且真能飞的机器蝴蝶,让它替蝴蝶上考场。这不是做一个机器人产品,而是造一台会飞的科学仪器。
二、USTButterfly-II:一台能"换翅膀"的实验动物
平台叫 USTButterfly-II,整机48.3克。机身33.7克、长13厘米,里面塞进了驱动模块、控制模块、通信模块和电源;双翼总质量14.6克,占整机30%。翼展57.5厘米,最大弦长37厘米——这个尺寸已经不是微纳机器人,而是"手掌大到需要双手捧着放飞"的量级。拍打频率最高5赫兹,与真实蝴蝶同量级。
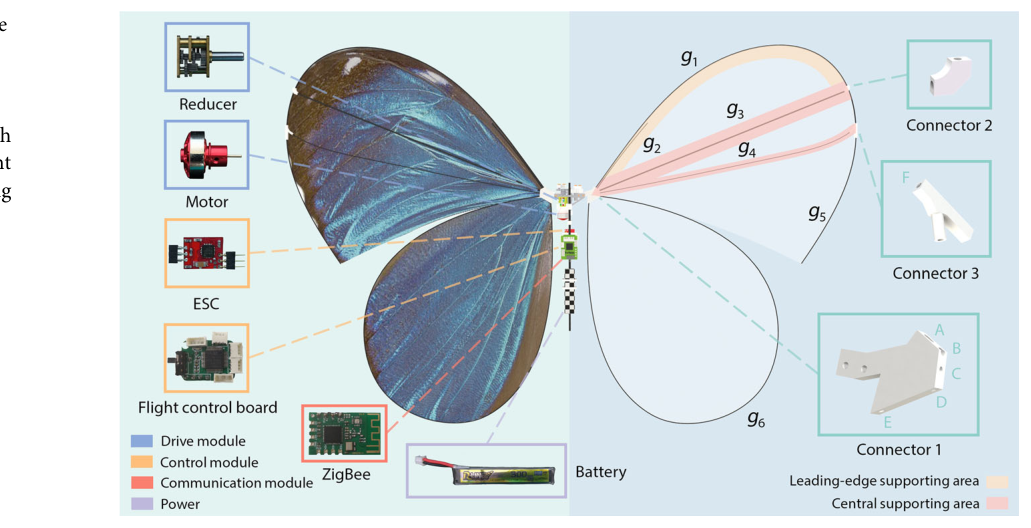
机构设计里有个细节特别体现"生物学知识如何裁剪工程自由度":蝴蝶不像苍蝇和蜜蜂,扑翼时没有明显的翅膀转动(Tanaka & Shimoyama, 2010),而且前后翅同步拍打。所以作者干脆只保留平面拍打这一个主自由度,用一套双曲柄双摇杆机构、单个电机加减速器,靠两个等径直齿轮啮合来同步左右翼。
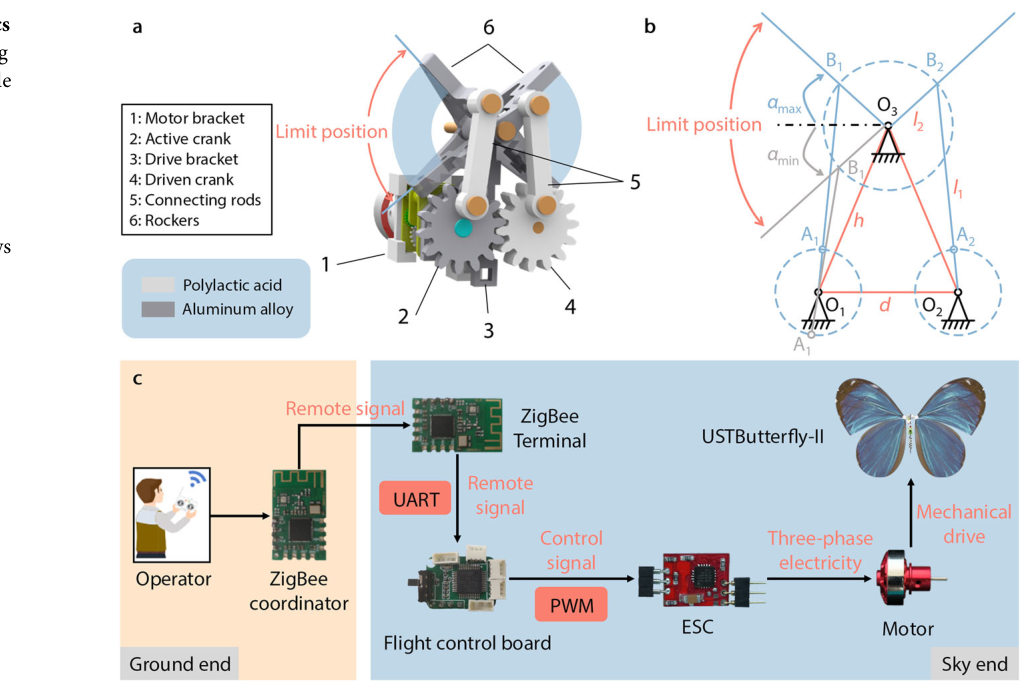
几何参数给得很细:h=16.8毫米、d=13毫米、连杆 l1=15.65毫米、曲柄半径 ρ=4毫米、摇杆 l2=6毫米,拍打幅度84°(αmax=42°、αmin=−42°)。作为对照,帝王蝶在攀爬飞行中的拍打幅度是95.5°到145.5°。作者为了保证四杆机构传动稳定,采用了上下行程等幅的对称设计——这就是典型的"工程可行性反过来咬一口仿生度"的取舍,论文也没藏着。
电机与传动同样有据可依:依据准稳态理论,升力 Flift 正比于拍频平方、翼面积与拍打幅度,作者以既有 USTButterfly 的性能参数为基准做升力冗余设计,定出5赫兹的额定拍频;再由 nr=60·k·fr/η 反推,取传动效率80%,选定减速比210:1的减速器。飞控板自制,20×15毫米、1.1克,主控 STM32F103C8T6。
仿生翼的精髓在翅脉。真实蝴蝶翅膀由管状翅脉支撑,并分成"被动变形区"与"支撑/限变形区"(Wootton, 1981)——后者类似帆船的桅杆与帆桁。作者用碳纤维与玻璃纤维棒复刻这套结构:前缘支撑区用1.2毫米碳棒(g1)加1毫米短碳棒(g2);中央支撑区用1.5毫米碳棒(g3)配更柔的0.8毫米玻纤棒(g4);外后缘 g5 用1毫米玻纤棒;后翅仅用一根1毫米碳棒(g6)构成轮廓。翼膜是0.03毫米厚的氯化聚乙烯(CPE)。硬棒定形、软棒留柔,翅膀的被动弯曲与扭转就这么"配"出来了。
顺便说一句容易被忽略的事实:这台机器经历了至少五次大的迭代,包括子系统重设计与验证、硬件与材料重选、结构适配,以及零件几何、装配流程和重心配置的反复微调。想做交叉学科平台的同学请把这句话抄下来——平台本身,就是第一项科研成果。
三、把翅膀编码成三个数:WMP 的设计哲学
这是全文我最想让学生反复读的一节。要研究"形状→性能",第一步是把无穷维的形状压缩成几个可制造、可独立的数。作者提了三条硬约束:数量要少、彼此要独立、工程上可实现,同时还得代表生物学上典型的几何特征。
最终定下三个翅膀形态参数(WMP):TC,前翅后缘收敛比,等于 LT/L,是面积分布参数,调节前翅后缘的面积沿翼展怎么摊;L,前翅特征长度,尺度参数,缩放整只前翅;H,后翅特征长度,从翼根到后翅末端,通过改后翅翅脉 g6 实现。L 与 H 互不干扰,且分别主要改变翼展与弦长,正好覆盖"展长变化"和"弦长变化"两种展弦比(AR)变化路径。
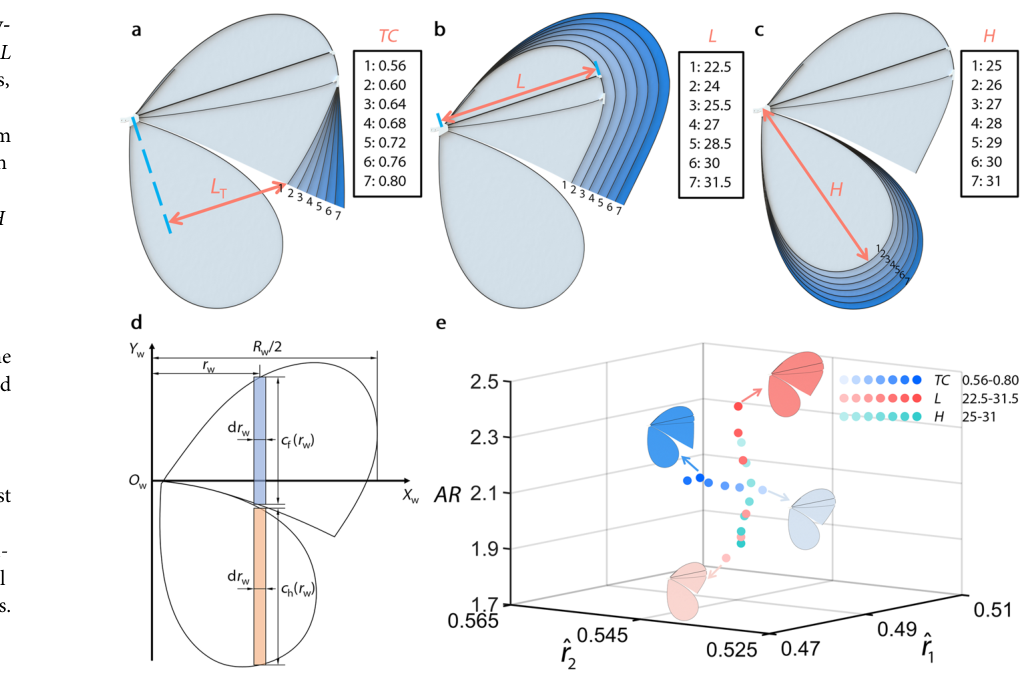
样本集共19对翅膀:每个参数7个水平,共享同一基线(TC=0.60、L=27厘米、H=27厘米),每次只改一个参数、其余固定(即所谓 one-factor-at-a-time)。加工精度控制在 TC ±0.01、L 与 H ±2毫米以内。最关键的一条是:所有仿生翼的质量变化可忽略。否则你测到的性能差异,到底是形状带来的,还是质量带来的?这个问题不解决,后面所有统计都是沙上建塔。
这里的取舍很清醒。蝴蝶翅膀的真实几何远比三个参数复杂,但作者宁可牺牲"完全复刻",也要换取"可控且可量化"。在交叉学科里,可解释的参数化往往比高保真的复刻更有科学价值——因为你最终要的是因果,不是cosplay。
四、数据的诞生:14台相机、7个标记点、95次飞行
有了平台,接下来是"怎么测"。作者在7.2×12米的房间里布了14台 OptiTrack Prime 17W 相机(分辨率1664×1088、最高360帧、被动捕获距离15米):四角各一台,其余沿四边均匀排布、间距约3米,全部吊在铝桁架上经 PoE+ 交换机回传。
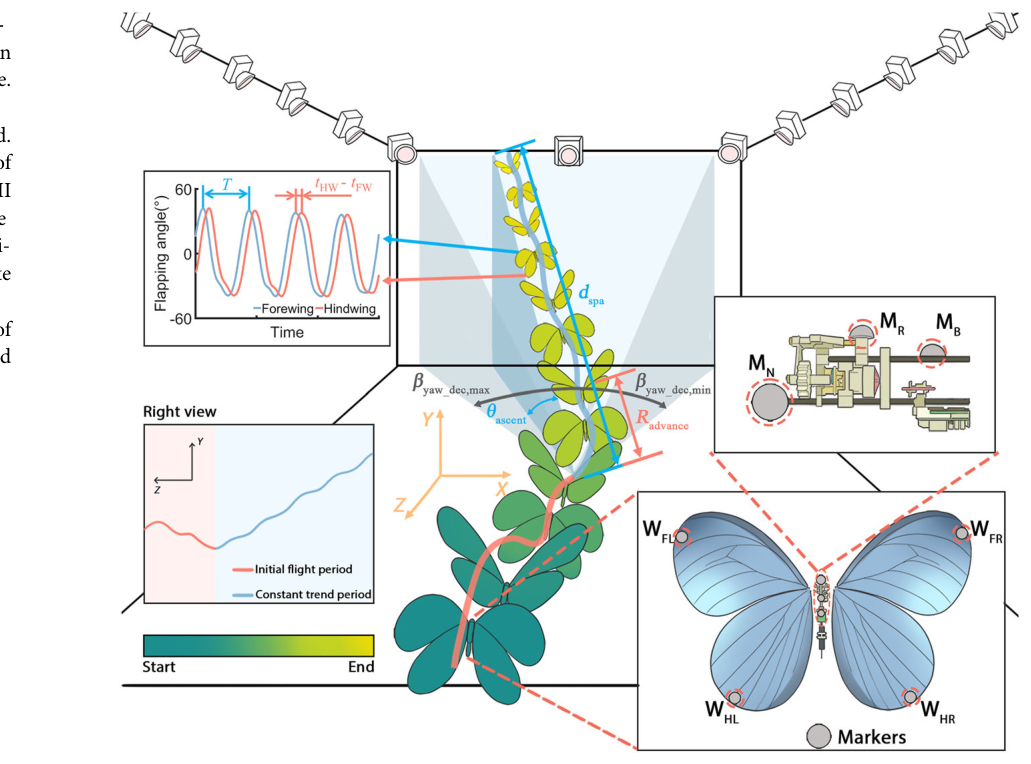
标记点布局直接服务于五个飞行特征参数(FCP)的定义。机身上三个点(MR、MB、MN)位于对称面内,间距超过直径三倍以防误识别,用悬线法反推重心;翼尖四个点用于算拍打角,从而得到拍频与前后翅相位偏移。标记点丢失时用 Motive 的三次多项式插值补齐。
实验流程同样"刻板":抛掷起飞,离手后恒定油门——保证不同翼型下能量供给一致;起飞初段因速度低会掉高,因此只取稳态段且要求包含三个以上连续体振荡周期(以每个振荡波谷为起止)作为有效数据;每种翼型重复5次;每组实验前检查电池电压,波动控制在0.1伏以内。直线飞行由偏航判定角 βyaw dec 是否在 ±20° 内决定,超了就补测。
还有一步叫"异常态剔除",值得单独点赞。作者预设两种异常飞行状态:失速(平均速度低于1.55米/秒)与坠落(平均上升角低于−5°)。结果 TC=0.56 的样本失速、L=22.5厘米的样本坠落,二者被排除;并且作者补做了敏感性分析,确认剔除后不改变ANOVA的整体显著性模式(上升角对 L 的回归相关系数反而提高 Δr=0.60,线性关系更清晰)。先定义什么叫"不正常",再谈规律——这才是统计推断该有的样子,而不是跑完回归看见离群点再偷偷删。
五、先证明它"像蝴蝶":不然一切白做
用机器蝴蝶代替真蝴蝶,必须先回答两个效度问题:形态像不像?飞行模式像不像?作者两问都答了。
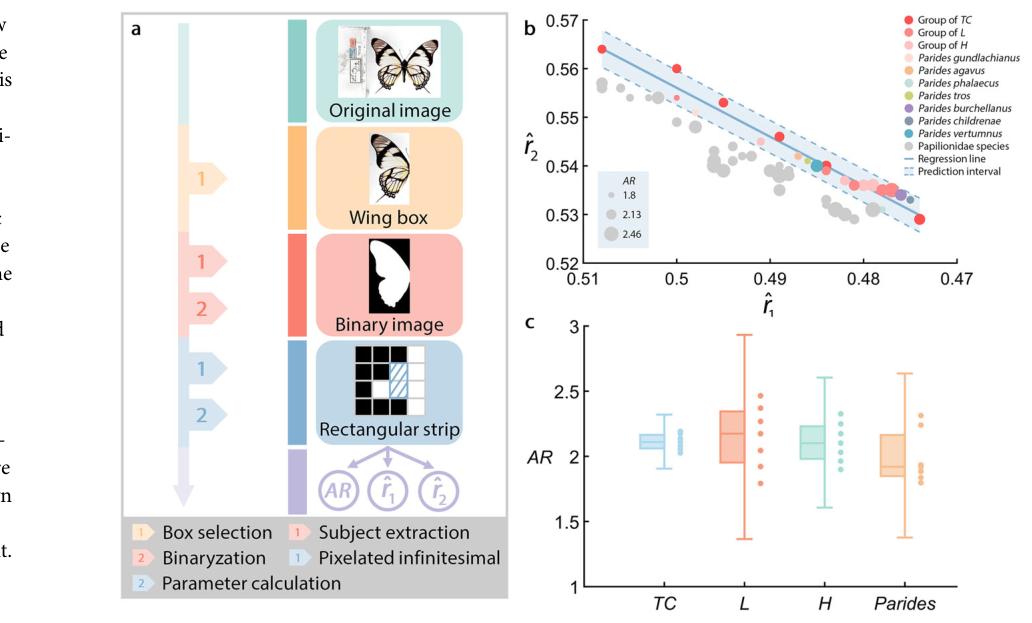
形态这一侧,他们从"Butterflies of America"网站取了172张凤蝶科(Papilionidae)标本图,覆盖该科全部可得物种;裁剪出左翅区域、去掉触角与尾突、二值化,以单像素列为等宽条统计弦长,按 Ellington 的无量纲化方法算出 AR、r̂1、r̂2。结果:36只凤蝶与仿生翼落在同一 AR–r̂1–r̂2 分布区间内,其中7种 Parides(裳凤蝶族的一类)在95%预测区间内与仿生翼的 r̂1–r̂2 相关性一致。
飞行模式这一侧,作者把高度轨迹做了特征分解:Talt = Ttrd + Tosc,其中平均趋势 Ttrd = bt + c 近似线性(斜率 b 直通上升角),机体振荡 Tosc = a·sin(ωt − π/2) 为正弦(角速度 ω 直通拍频)。这个"线性趋势叠加正弦振荡"的结构,与 Kang 等(2018)对真实蝴蝶攀爬飞行的刻画是一致的。
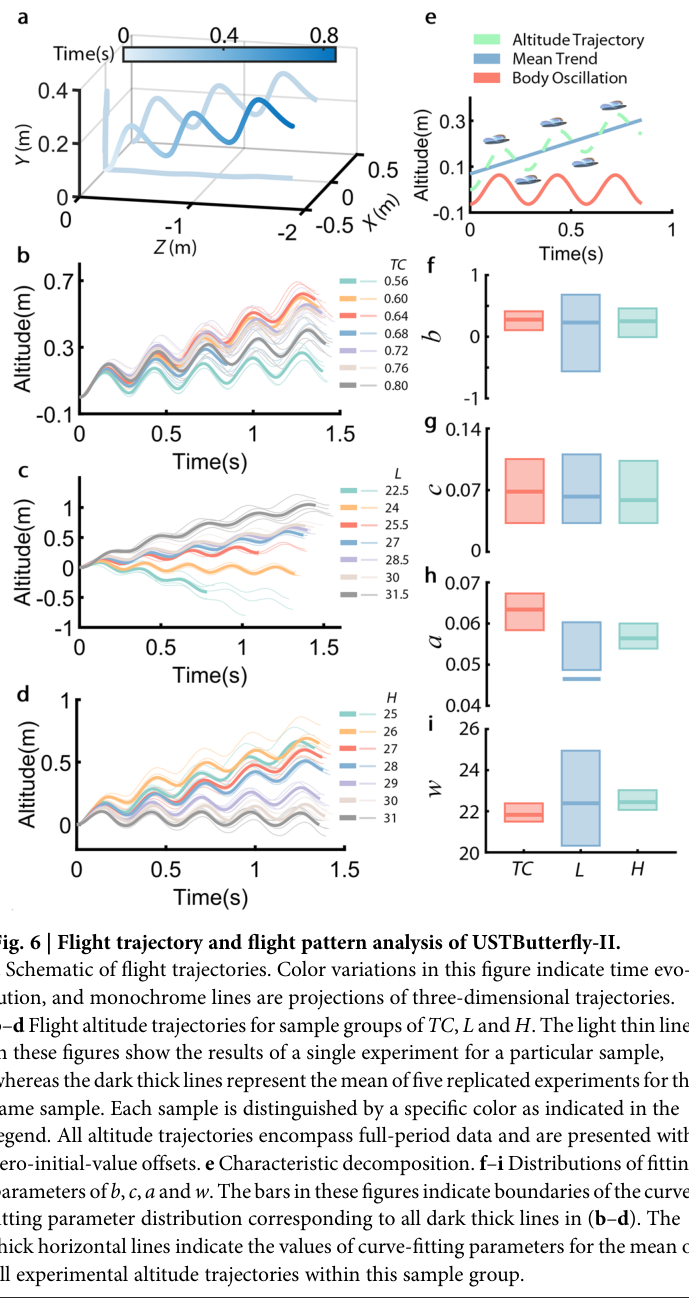
但作者紧接着踩了一脚刹车,而且踩得很漂亮:尽管飞行模式相似,机器蝴蝶与真蝴蝶的尺度差异排除了严格的动力学相似,因此后面得到的所有形态-性能关系,都不能直接外推到真蝴蝶,只能视为关于真蝴蝶的、可检验的生物学假设。这句话的分寸感,是高水平交叉学科论文的标配。
六、形态如何支配性能:从PCA到ANOVA的因果叙事
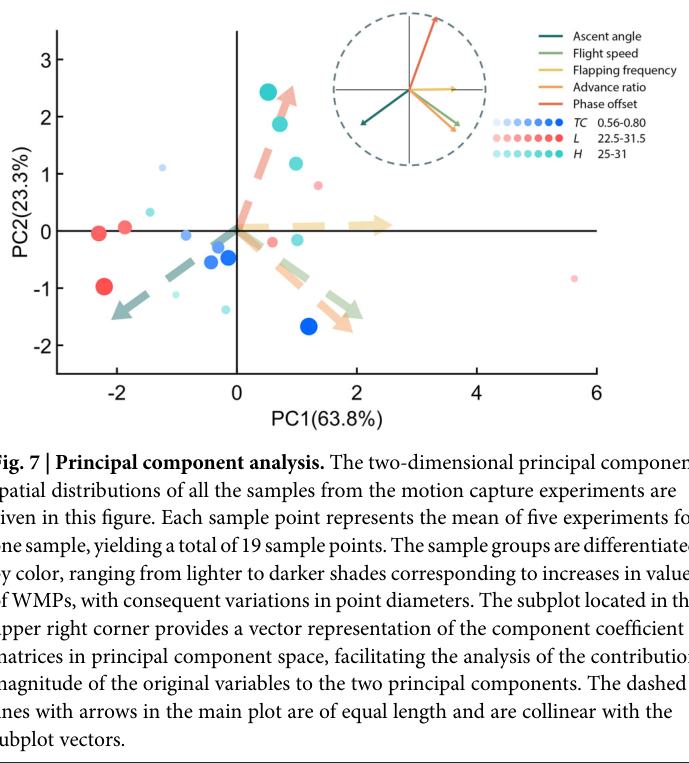
19个样本、每个5次重复的运动捕捉数据先做PCA。两个主成分累计贡献87.1%:PC1 主要反映飞行速度与拍频,PC2 主要由前后翅相位偏移主导。更有意思的是三组样本在PC空间里的排布方向——TC 组沿左上到右下排成一线,与速度、前进比的特征方向平行;L 组从右上到左下,与上升角、拍频方向一致;H 组从左下到右上,贴着相位偏移方向走。
接着是逐参数的定量检验,也就是全文的"因果主菜"。
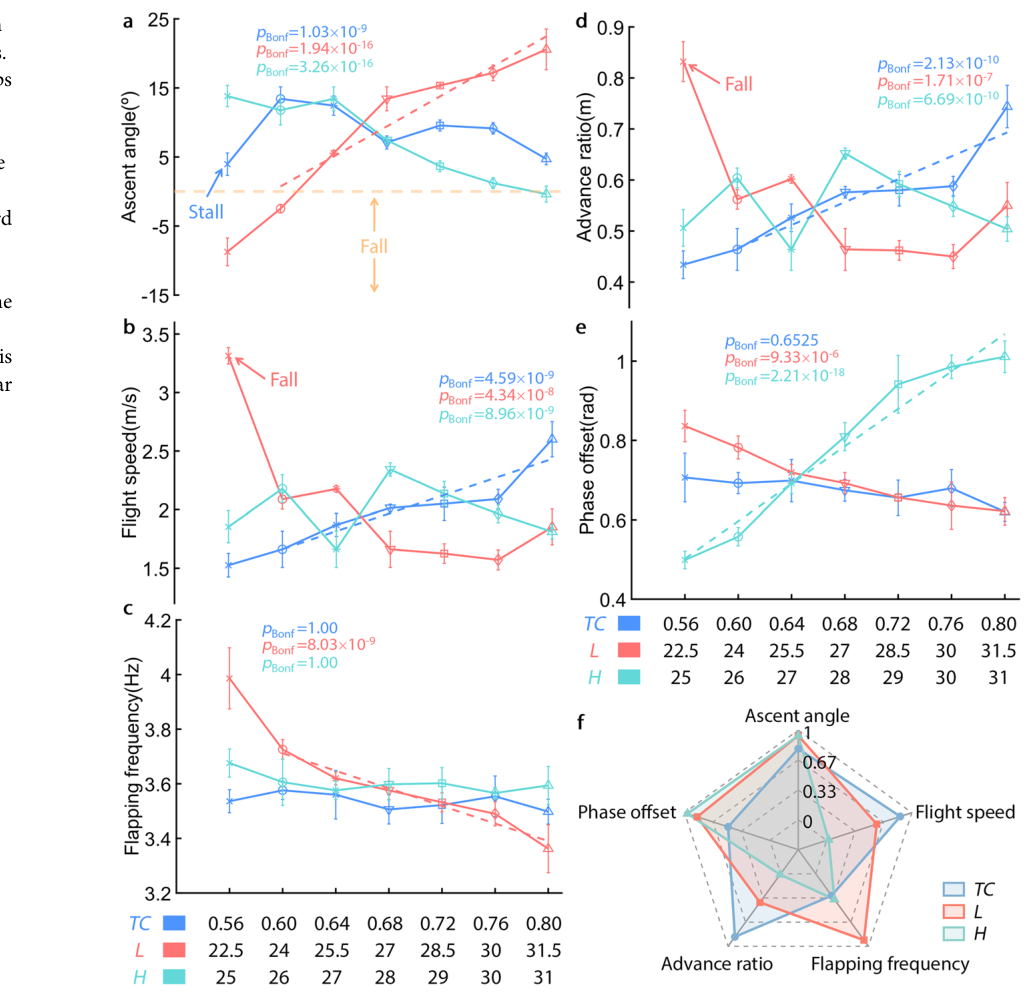
TC(前翅后缘收敛比)对上升角、飞行速度、前进比都有显著影响,方差解释量 η² 分别为0.89、0.88、0.91,统计功效均为1.00,与飞行速度和前进比的相关系数 r 为0.86和0.87。作者给出的机制解释是"翼尖涡+面积矩"双重调制:TC 小,翼尖更尖锐(类似三角翼),翼尖涡弱、升阻比高、升力好,但面积矩小、推力弱;TC 大,翼尖更宽凸,面积矩大、推力强,但翼尖涡增强、升力下降。由此推断:尖翼尖的蝶种可能更善爬升,凸翼尖的蝶种更适合高速飞行。
难得的是,作者明确指出这个结果与 Le Roy 等(2021, Science)在真实闪蝶上得到的结论并不一致,并推测差异来自其他形态特征的混淆与个体差异,因此只把它当作需要生物学验证的初步推断。这种"和顶刊结论对不上时如实写、并给出可能原因"的处理,比强行圆场要体面得多。
L(前翅特征长度)对五个FCP全部显著(pBonf < 1×10⁻⁵)。其中对上升角的影响最突出(pBonf < 1×10⁻¹⁵,r=0.94,η²=0.97):L 越大,上升角越大、升力越好,机制上对应 AR 上升带来的升阻比提升。同时 L 与拍频显著负相关(r=−0.91,η²=0.87):前翅是升力与推力的主来源,L 增大使扑翼阻力矩上升,同样油门下拍频就被拖下来了。
这条负相关恰好为既有生态学解释提供了受控证据:短翅因阻力矩小、易拍动,可支撑更高拍频,从而产生更大滚转力矩、实现快速转向,适合杂乱环境;长翅则更契合滑翔与迁徙。作者由此提出一个可检验的生物学假说——高 L 蝶种可能以更少的主动扑翼达到同样爬升高度,从而延长滑翔、降低飞行能耗,但这一假说需要活体观测与能量测量来检验。
H(后翅特征长度)的"主战场"是前后翅相位偏移(pBonf < 1×10⁻¹⁷,r=0.97,η²=0.97),同时也显著影响上升角(η²=0.95):H 减小,平均弦长减小、AR 上升,爬升改善,到27厘米以下趋于平台。机制解释是柔性差异——前翅因翅脉设计刚度更高,后翅更柔、被动变形更大,翼尖相位始终滞后于前翅;H 增大则前后翅柔性差拉大,异步加剧。作者同样提醒:真蝴蝶前后翅有部分重叠,实际异步会弱于机器人,故此处只是机制性的提示。
表1|三个翅膀形态参数的"性格画像"(数据整理自原文 Fig. 3、Fig. 8 及补充表)
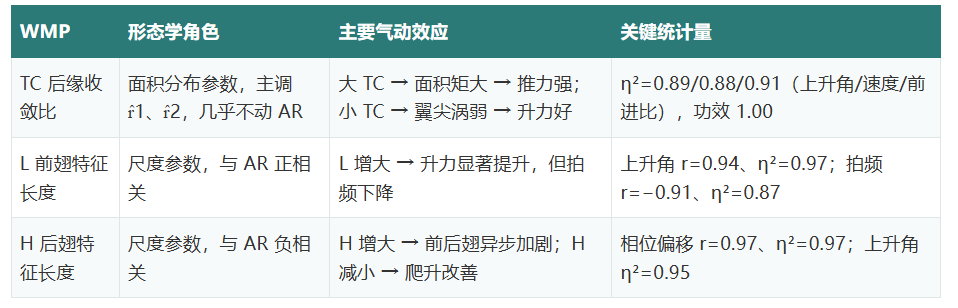
如果给这三个参数拟人化:TC 是"翼尖造型师",决定力气花在爬升还是冲刺;L 是"滑翔主义者",长一点、慢一点、飞得更省;H 是"节奏破坏者",它主要把前后翼的合拍度搅乱。三者合起来,才构成蝴蝶翅膀形态-性能关系的第一张定量地图。
七、AI 入场:把"设计翅膀"变成一个马尔可夫决策过程
到这里,论文从生物学转向工程优化。既然形态与性能的关系已被统计确立,下一步自然是:给定任务(大升力载重飞行 / 大推力快速侦察),自动搜出一副最优翅膀。
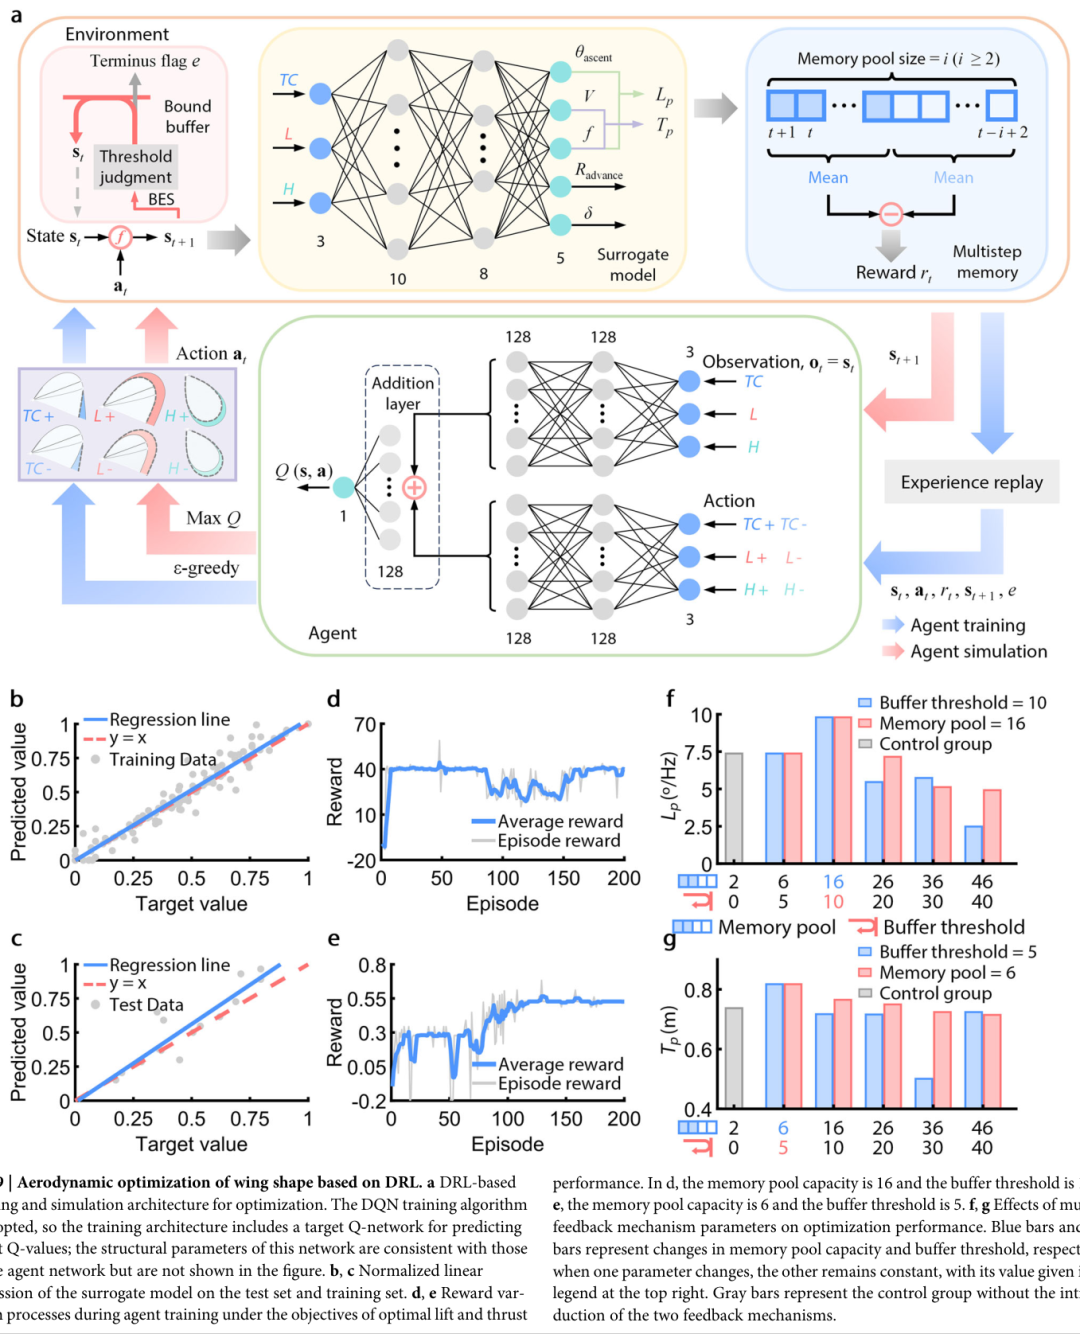
状态被定义为三元组 s = [TC, L, H],边界取 [0.6, 24, 25] 到 [0.8, 31.5, 31]。这个边界不是拍脑袋定的:下界要避开失速与坠落等异常飞行态,上界要兼顾制造可行性与实验空间(L 的上界受限于能否采到足够的有效飞行数据)。动作用离散空间:每个WMP 对应"增/减"两种变化,共6个动作,步长 TC ±0.005、L 与 H 各 ±0.1,取值保证状态空间被近似等分。
优化目标是从FCP里提炼的两个指标:升力性能 Lp = θascent/f,即单位拍频的等效上升角,用来剔除"靠提高拍频偷分"的假象;推力性能 Tp = V/f,定义上与前进比一致。这一步叫指标设计的"归一化"——不这么做,agent 很容易找到一个"疯狂扑翼"的作弊解。
环境里最贵的一环被神经网络替换了:代理模型(前馈网络 + 贝叶斯正则化)负责把WMP映射到FCP。数据来自前面19对单参数翼,外加"交叉变异"样本以覆盖三维形态空间,FCP取5次实验均值,按89%/11% 划分训练与测试。拟合相关系数训练集0.97、测试集0.9;作者还用独立留出的物理实测评估不确定性,三个样本的五个FCP归一化预测RMSE均低于0.15,Lp 与 Tp 的预测偏差分别低于 2×10⁻¹ 度/赫兹与 2.4×10⁻² 米。小数据场景下用贝叶斯正则化(MacKay, 1992)压制过拟合,是个很"老派"但正确的选择。
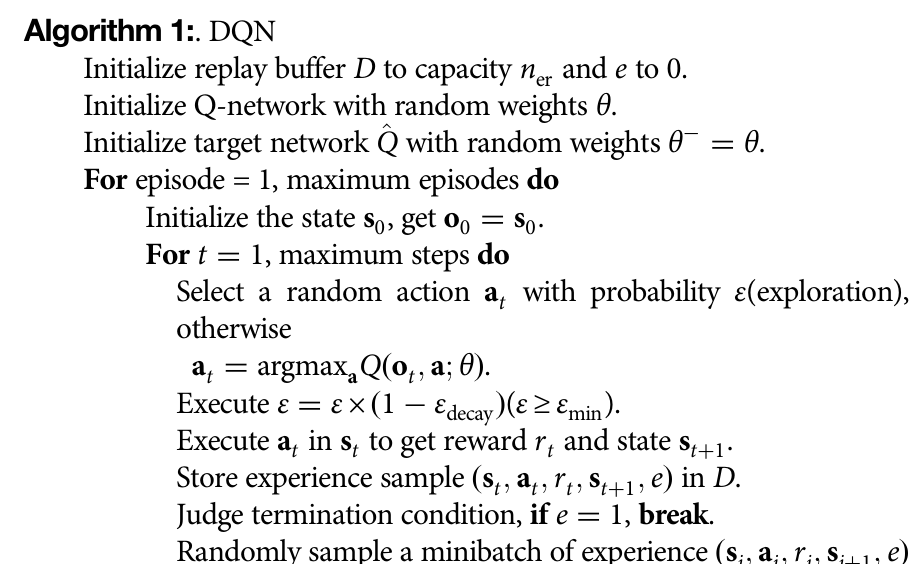
这里最值得AI方向的学生琢磨的,是问题重构的方式。作者没有训练一个"输入翼型、输出性能"的监督模型然后网格搜索最优——那种做法只能复现已有数据的答案,且在高维空间里寸步难行。他们把设计过程建模成序列决策:agent 一步步决定"往哪个方向改一点翅膀",在代理模型的外推空间里行走。这是把优化问题转化成了搜索问题,也是DRL在这种"数据贵、样本少、空间连续"场景下真正的价值所在。
八、两个"环境工程"小妙招:多步记忆与边界缓冲
如果说这篇论文在AI方法上有什么原创贡献,那就是这两个奖励/环境层面的机制设计。它们都不改算法,只改"环境怎么说话"。
第一个是多步记忆机制。传统的翼型优化奖励只看相邻两步的目标差值 rt = Ap,t+1 − Ap,t。作者模仿人类决策的"记忆":把记忆池里一段历史等分成新旧两期,奖励取两期性能指标均值之差。这一步的意义可以从两个角度理解——从信号处理看,它相当于对性能指标的瞬变做移动平均滤波,压掉了短期噪声;从贝尔曼方程看,目标Q值本来是从终态向初态反向传播,多步记忆则把前向的历史信息注入了这个反向过程,形成"前向-反向"双向传播,加速学习并降低陷入局部最优的风险。
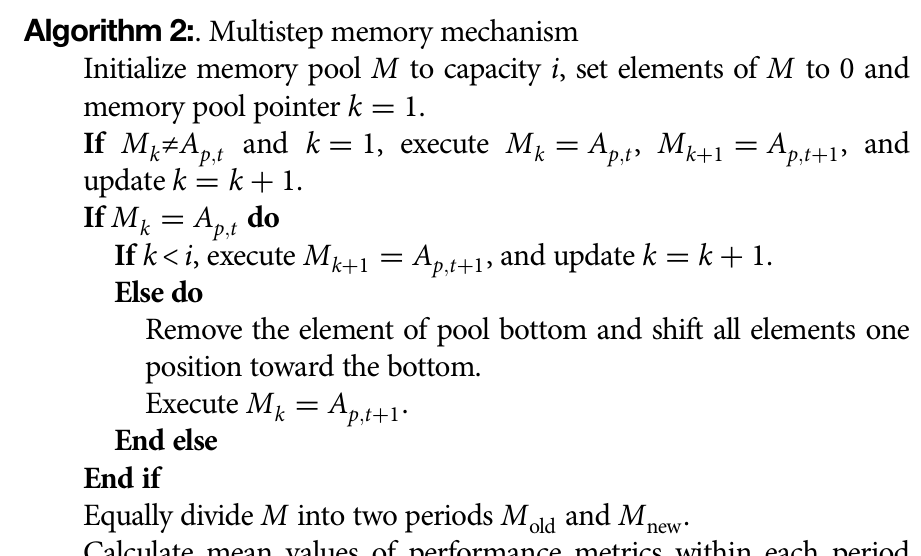
容量怎么选?实验结果是个漂亮的倒U形:升力目标最优16、推力目标最优6,再大反而变差。原因也很直觉——过度强调长期差异,会让 agent 对当前这一步的性能变化失去敏感,学不到针对具体状态的有效策略。这类"适度记忆最好"的结论,在认知科学与RL里其实遥相呼应。
第二个是边界缓冲机制。常规做法是状态越界就终止回合,但形态空间本来就狭窄,agent 很容易撞到边界;而某一维越界时,其余维度明明还有搜索空间,直接终止等于提前放弃。作者的改法是引入缓冲阈值:越界时先不终止,只把越界的那一维回滚、其余维正常更新,越界次数累计到阈值才真正结束。等于环境在"主动避免终止探索",逼着 agent 继续尝试潜在更优的策略。最优阈值为升力10、推力5。
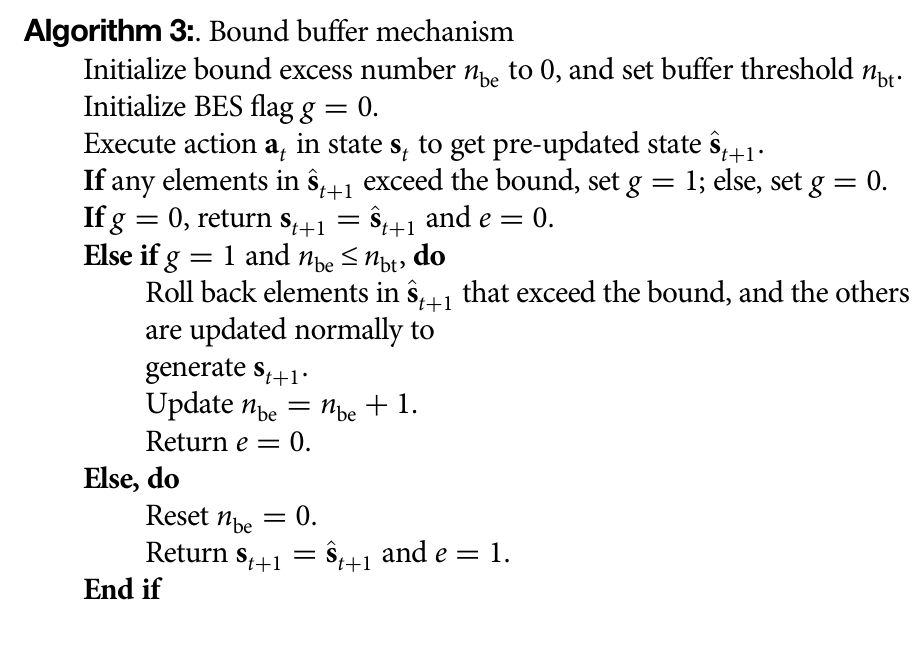
两项机制叠加的收益是:相比不引入多重反馈的对照组,升力优化性能提升33%、推力提升11%;在最优参数下,两个目标的平均奖励分别在约160与120个回合后达到高位并在窄幅内波动,说明策略确实收敛了。
RL 圈里有句半开玩笑的话:agent 学不会,十有八九是环境不会说话。这篇论文给这句话提供了一个干净的实验证据——换来的提升不是靠更深的网络,而是靠更会教的环境。
九、结果:+339% 升力、+46% 推力,然后真的飞了
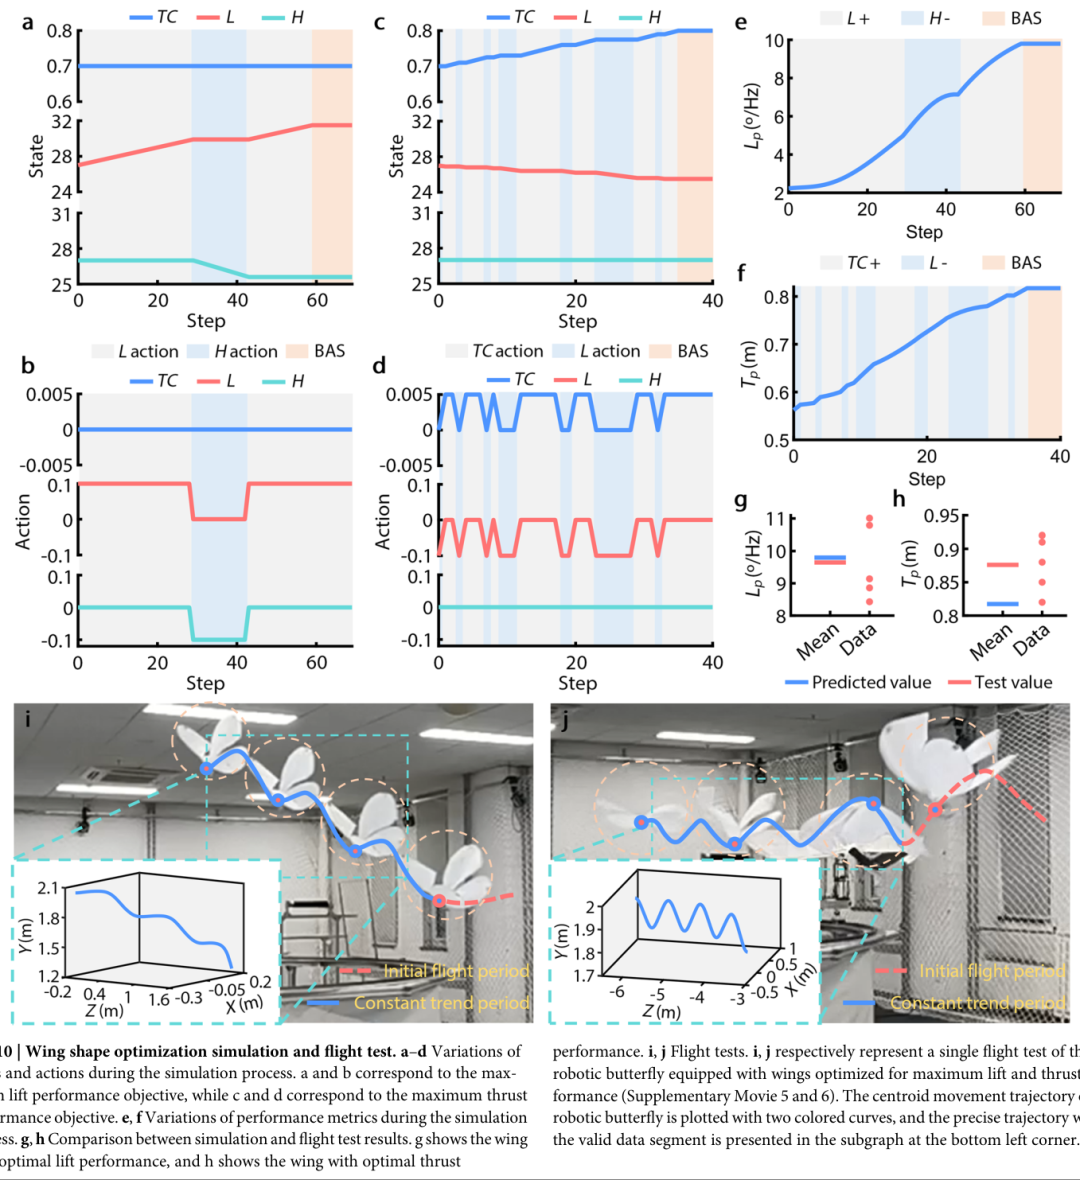
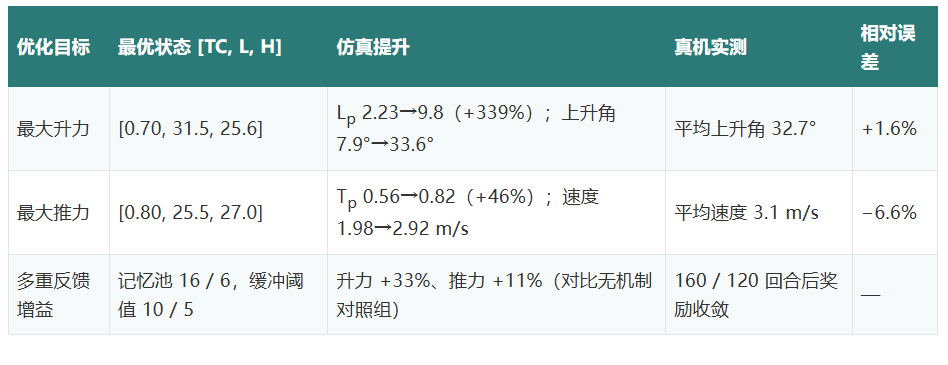
基线翼取状态空间中部的 [0.7, 27, 27]。在最大升力目标下,优化过程分四段推进:0–29步 L 增大,29–43步 H 减小,43–59步 L 继续增大,第59步 L 触到上界进入"边界到达态",随后在缓冲机制下又走了10步才终止,终态 [0.7, 31.5, 25.6]。Lp 从2.23升到9.8,+339%;上升角从7.9°升到33.6°,+325%。机制解释是:L 增大与 H 减小共同作用,使 AR 近似"平方级"上升,升阻比随之大幅改善。
最大推力目标下则是另一种风格:agent 在 TC 与 L 之间交替微调,第35步 TC 触上界,第40步终止,终态 [0.8, 25.5, 27]。Tp 从0.56升到0.82,+46%;飞行速度从1.98米/秒升到2.92米/秒,+47%。机制是 TC 增大让翼尖更凸、面积矩增大,扑翼时产生更大推力;同时 L 略减使翼面积减小、翼载上升,也助推了速度。
还有一组我很欣赏的对照实验:把状态边界放宽到 [0.9, 35, 31] 再跑,得到的最优解是 [0.7, 33.6, 25.4] 与 [0.85, 26, 27],都不在新的扩展边界上。这说明 agent 找到的是内部最优点,而不是"无脑把参数推向极端"——后者是代理模型外推区最容易出现的伪最优。作为参照,代理模型穷举搜索得到的全局最优是 [0.65, 31.5, 25] 与 [0.8, 25.3, 26.5],与agent的结果吻合。
最后,也是最关键的一步:把AI给的翅膀真的造出来飞。装上升力最优翼的机器蝴蝶表现出明显的爬升特性,飞行试验平均上升角32.7°;装上推力最优翼的则大致保持平飞而不掉高,平均速度3.1米/秒。与仿真相比,相对误差分别为1.6%与−6.6%,全部低于7%。横向比一下更有说服力:这两个优化翼比19对单参数翼中表现最好的那两只,上升角还高59%(单参数最佳为 L=31.5厘米、20.6°),速度还高19%(单参数最佳为 TC=0.80、2.6米/秒)。多参数协同的价值,被量化得清清楚楚。
表2|DRL 优化结果与真机验证(数据整理自原文 Fig. 10 及补充表 14、15)
十、给 AI+交叉学科的六点方法论启示
其一,交叉学科的第一性难题往往不是算法,而是"可控的实验本体"。这篇论文里,机器人不是产品,是仪器(robotics for science)。同一范式已经产出过一批漂亮工作:Ramezani 等用仿生蝙蝠平台研究飞行特化(Sci. Robot., 2017),Karásek 等用无尾扑翼机揭示果蝇的力矩耦合机制(Science, 2018),Phan 与 Park 用甲虫/扑翼机器人研究碰撞恢复(Science, 2020)。当生物体的自由度不可控时,造一个自由度可控的替身,是通向因果的第一步。
其二,参数化本身就是先验,AI 只能在人类"可表示"的空间里搜索。TC、L、H 这三个数不是随便挑的:它们背后是 Ellington 的面积矩理论、Le Roy 的翅形演化趋势、Wootton 的翅脉支撑区理论。换句话说,AI 的搜索空间,是几十年生物学积累先"铺"出来的。做交叉课题时,把 domain knowledge 编码进状态空间,比换更强的网络重要得多。
其三,数据贵的时候,"老派"方法常常更靠谱。一次数据点 = 造一对翅膀 + 飞五次 + 后期重建。面对这种成本,作者的应对是代理模型 + 贝叶斯正则化 + 独立留出实测评估不确定性。没有大模型,没有花哨架构,但每一步都有针对小数据的论证。这提醒我们:在科学AI里,不确定性量化比精度指标更重要。
其四,别只调算法,要调环境。多步记忆与边界缓冲都不属于算法创新,却带来了33%与11%的提升。奖励设计、终止条件、状态边界这些"环境工程",在真实科学问题上往往比网络结构更决定成败。值得注意的是,它们的设计灵感分别来自人类记忆机制与"别急着放弃"的朴素直觉——交叉学科的灵感经常来自另一片田野。
其五,闭环必须回到物理世界。仿真最优 → 造出实物 → 飞行实测 → 误差低于7%。没有最后一环,整篇文章就只是"神经网络的自言自语"。而且作者还做了横向对照(比单参数最佳翼高59%与19%),把"多参数协同"的价值单独证明了一遍。这是评审最看重的那种严谨。
其六,分寸感是高级的学术能力。论文反复强调:机器蝴蝶与真蝴蝶不存在严格动力学相似,所有形态-性能关系只能作为可检验的生物学假设,需要活体实验验证;与 Le Roy 等顶刊结论不一致的地方,如实写出并给可能解释。这种把"我们的结论到此为止"写清楚的能力,是交叉学科论文能否被两边共同体同时接受的关键。
十一、冷静的边界:这篇论文没有说什么
尺度差异是最大的那道墙。机器蝴蝶48.3克、翼展57.5厘米,真蝴蝶是毫克量级——雷诺数相差巨大,气动机制(尤其是非定常机制)未必共享。作者自己列出了几条明确限制:仿生翼在柔性、尺度与扑翼机制上仍需进一步逼近真实;形态变异采用一次一因子设计,无法刻画参数间的交互效应,下一步需要多因子实验来分离主效应与交互效应;实验只覆盖恒定油门下的直线扑翼飞行,未引入转向控制;代理模型在原边界之外的外推存在相当不确定性;H 对飞行速度未呈现一致趋势,其背后可能的非线性气动耦合机制目前缺乏直接证据,需要结合气动力测量与流场观测来破解。
把这些限制读明白,比记住339%更有意义。因为它们恰好标出了这个方向上"下一个博士课题"的坐标:多因子实验设计、流场与力测量联合、尺度相似性、闭环控制下的机动飞行优化。
十二、写在最后:给做 AI+交叉学科的你
这篇论文给了一个很漂亮的范式模板:先造一台可控且可信的测量机器,用它把自然界的"相关性迷雾"压缩成可重复的因果数据;再让AI在数据撑起的代理空间里搜索人类直觉到不了的设计;最后回到物理世界,用一次真实的飞行去检验它。三步缺一不可,而每一步的门槛都不在算法上。
如果你正在找交叉课题,不妨问自己三个问题:我的领域里,有没有一个"研究对象不配合"的老问题?我能不能为它造一个可控的替身或数字孪生?这个替身产生的数据,贵到必须用代理模型+主动搜索的程度吗?三个都答"是",你大概就找到了一篇顶刊的骨架。
蝴蝶不会告诉你它的翅膀为什么长成这样。但如果你造一只会换翅膀的机器蝴蝶,再配一个耐心搜索的智能体,它也许会替蝴蝶给出一个可验证的答案。

内容中包含的图片若涉及版权问题,请及时与我们联系删除


评论
沙发等你来抢