

一张单细胞快照,能告诉我们细胞此刻的状态,却无法直接告诉我们它从哪里来、将往哪里去。来自西湖大学与浙江大学的 PACE,以细胞状态空间的局部几何为线索,让跨时间配对与连续路径相互校正,从离散观测中推断更符合数据结构的群体演化。相关研究已被 NeurIPS 2026 接收。
如果只能复现细胞的“照片”,我们离真正的“虚拟细胞”还有多远?当 AI 开始尝试在计算机中模拟生命,一个关键问题愈发突出:我们已经能够细致地描绘细胞的分子状态,却仍难以可靠地重建这些状态之间连续发生的变化。对于虚拟细胞而言,这正是必须补上的能力——生命始终处于变化之中,细胞如何分化、何时转向另一种命运、受到干预后如何逐步改变,都需要放在时间中理解。相关研究也将动态状态列为构建虚拟细胞的核心支柱。要让虚拟细胞真正帮助我们理解和预测生物学过程,就必须深入细胞状态演化的动力学。然而,这恰恰是最难的一步:成千上万个分子变量相互耦合,让细胞变化发生在复杂的高维空间中;单细胞测序又往往以破坏细胞为代价,留下不同时间点的零散快照,难以连续追踪同一个细胞。我们因此面临一个双重困境:真实的变化过程难以直接观测,高维动力学又难以学习、验证和解释。更棘手的是,模型即使预测对了每个时间点的细胞分布,也可能推断出错误的演化路径。 同样的起点和终点之间,可以存在截然不同的变化过程;一条看起来平滑的曲线,也可能横穿本不该相连的发育分支。如何从有限快照中,重建更有依据、能够接受独立生物学证据检验的连续演化过程,成为通向可信虚拟细胞的一项基础挑战。PACE 正是从这里切入:利用细胞状态空间的局部几何结构,让“哪些状态应当相连”与“中间应当怎样变化”相互约束,将离散的单细胞观测连接为连续的群体动力学,为虚拟细胞理解和预测生命的变化过程提供一块关键拼图。
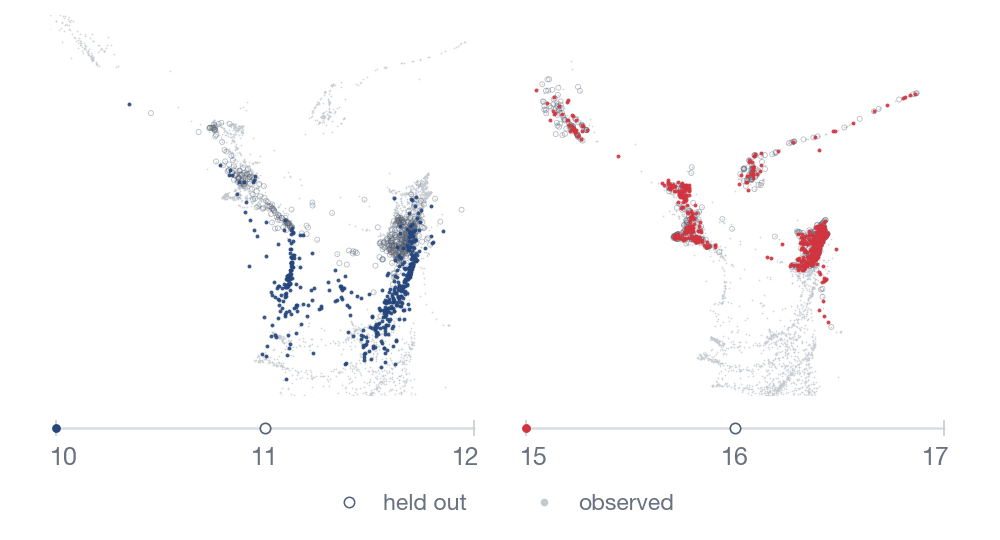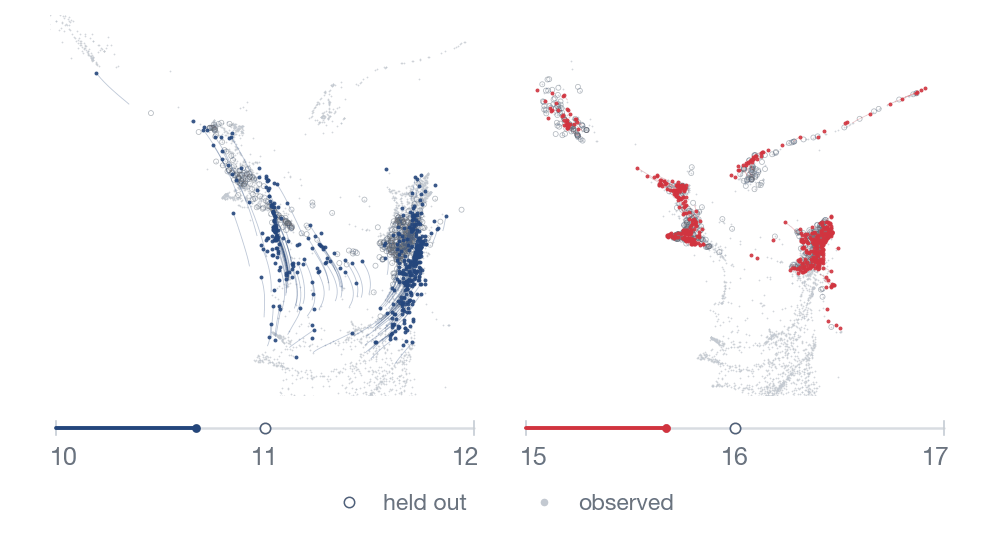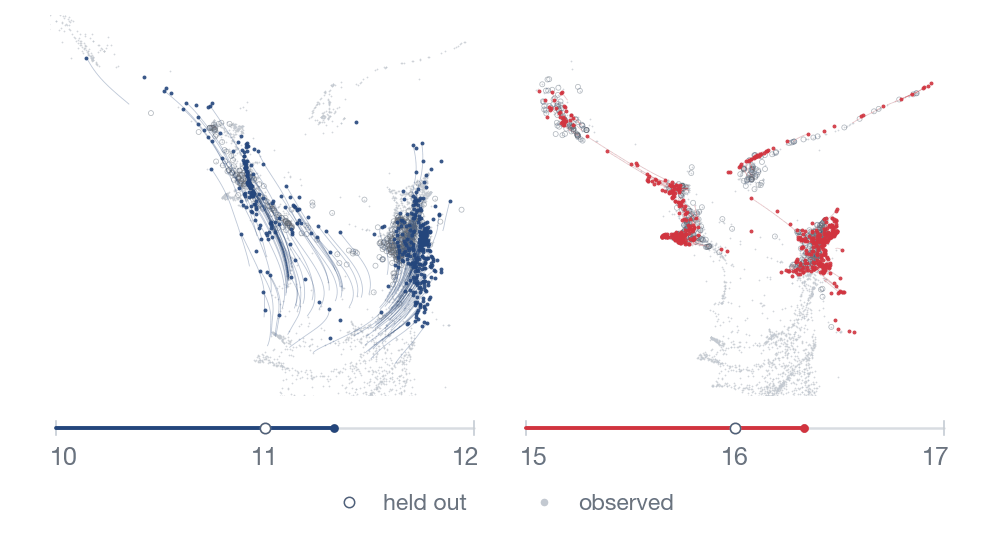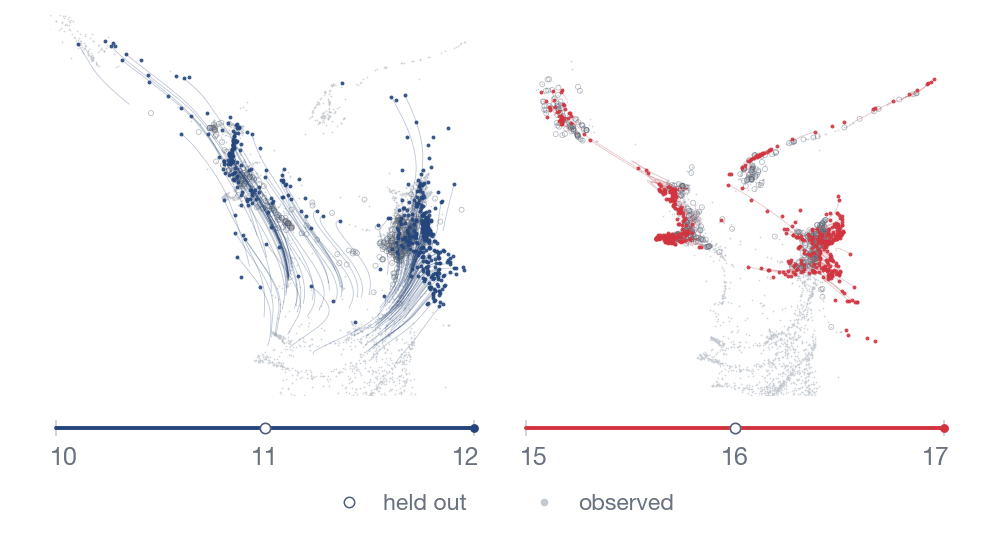
PACE 在小鼠细胞重编程数据上的推断演示。左、右分别展示第 10→12 天和第 15→17 天的区间重建,空心圆标示留出的第 11、16 天快照。彩色点与线为二维表征空间中的模型预测,并非同一细胞的真实连续记录。此 GIF 使用项目演示模型,定量结论以论文实验为准。
只有快照为什么难以还原轨迹?
单细胞测序可以记录细胞的分子状态,但测量通常会破坏细胞,难以持续追踪同一个体。实验留下的是不同时间采样的细胞群体,而不是每个细胞完整的变化记录。
第一层不确定性是跨时间配对。前一时刻的一种细胞状态,应当与后一时刻的哪种状态相连?多种对应关系都可能解释同样的群体分布。
第二层不确定性是中间路径。即使起点和终点已经确定,中间的路线仍然不唯一。直线、弧线或更远的绕行,都可能连接这两个端点。
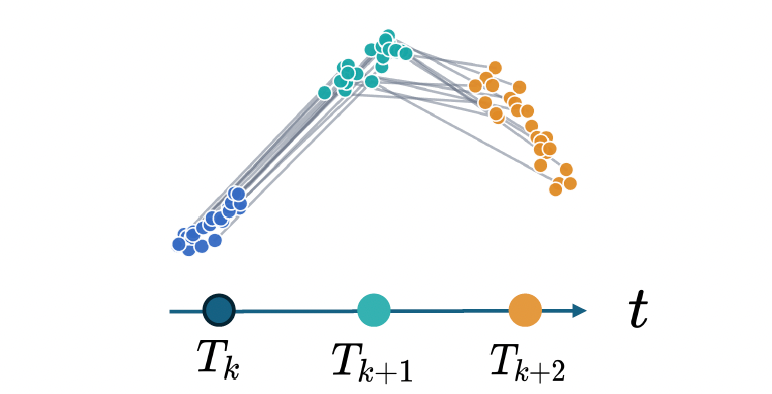
不同颜色表示不同时间采样的细胞群体。快照之间的连线需要模型推断,不能直接视为观测到的细胞对应关系。
此外,实验时间也不等于细胞的发育进度。同一天采样的细胞可能处于不同阶段;在表达空间中相距较近的两个状态,也可能属于不同分支。因此,仅按欧氏距离匹配,可能把不相容的状态连接起来。
这意味着,即使模型准确匹配了每一个观测时间点的分布,中间的动力学仍可能不同。PACE 因而把局部几何作为选择路径的依据,在同样符合快照的多种解释中,优先选择运动方向与局部数据结构更一致的解。
局部几何为细胞状态变化提供方向约束
当细胞状态沿着一条弯曲分支分布时,顺着分支移动通常比横穿分支更符合观测数据。这类似于沿弯曲道路行走:两点的直线距离很短,可行路线却受到道路形状的影响。
PACE 先用局部主成分分析(PCA)估计邻域中的主要变化方向。沿局部结构延伸的是切向方向,偏离局部结构的是法向方向。随后,模型根据空间位置和实验时间,将这些局部信息平滑组合。
由此构造的几何度量,对法向运动施加额外代价,使模型更倾向于顺着数据结构连接快照。这是一种软惩罚,不是禁止模型离开数据流形的硬规则。
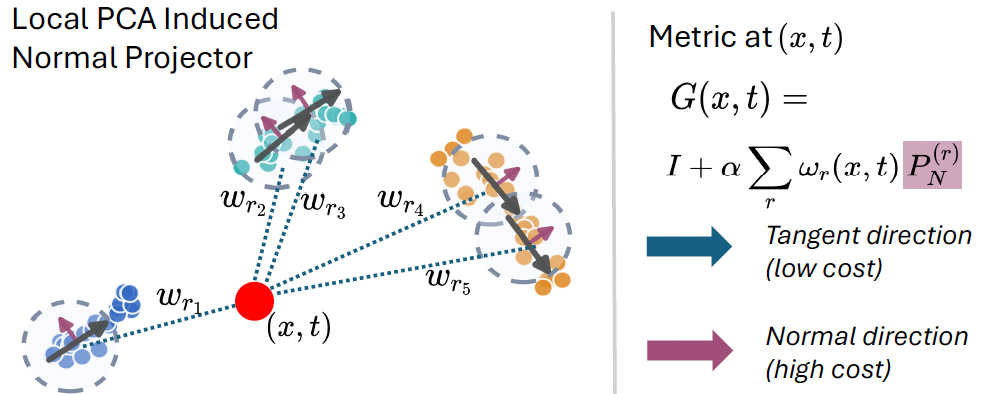
局部 PCA 提供切向与法向信息,时空加权将它们组合成连续的几何度量。沿局部结构的运动代价较低,偏离结构的运动代价较高。
这里值得区分的是位置和方向。细胞密度描述哪里有观测支持;局部几何进一步区分同一区域内的运动方向。两条路径即使经过相近的区域,也会因方向不同而具有不同代价。这个度量把数据的局部形状转化为对速度的约束,让模型更倾向于沿观测支持的方向连接快照。
PCA 本身无法判断时间的正反。局部几何提供的是先验,状态演化还需要由跨时间快照和整体运输目标共同约束。
让路径的合理性反过来决定配对
有了几何度量,还需要解决两个紧密相关的问题:哪些状态应当相连,以及它们之间应该怎样变化。
如果一开始就固定所有配对,几何信息只能改变既定连接的形状。PACE 以同一几何作用量为核心,交替更新路径与对应关系,让路径的代价也能影响连接关系本身。
第一步,固定当前配对,学习连续路径。我们用神经网络构造连接两个端点的“桥”,保持起点和终点不变,调整中间形状,使整段运动在几何度量下具有较低代价。
第二步,根据路径代价,更新配对。PACE 为候选端点计算整条连接路径的几何代价,再通过最优传输更新跨时间的对应关系。两个状态即使在欧氏空间中很近,如果连接它们需要明显偏离局部结构,匹配代价仍可能很高。
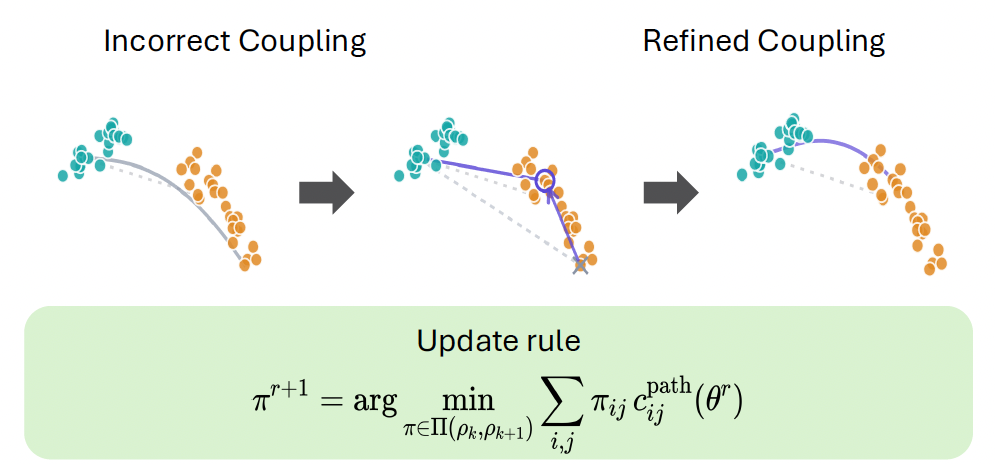
当前配对为路径学习提供边界条件,路径的几何代价再反馈给配对更新。两者通过交替优化相互影响。
最后,PACE 将依赖端点的桥的速度蒸馏为一个全局速度场。给定细胞状态和时间,模型就可以通过积分生成连续轨迹,查询观测快照之间的群体状态演化。
实验:既检验缺失快照,也检验运动方向
论文在 7 个受控及生物数据集、9 项留出快照重建实验中评估 PACE,覆盖旋转与分叉轨迹、胚状体分化、细胞重编程和多模态单细胞数据。
训练时仅使用部分时间点的快照,再预测未参与训练的时间点。MMD、Wasserstein-1(W₁)和 Wasserstein-2(W₂)用于衡量预测群体分布与留出快照的差异,三项指标均越低越好。
在生物数据上,更准确地重建缺失快照
在 EB PHATE、iPSC-Liu 和 Schiebinger2019 三个低维生物基准上,PACE 在全部九项时间平均指标中取得最佳结果。相对于每个数据集、每项指标对应的最强基线,误差降幅如下。
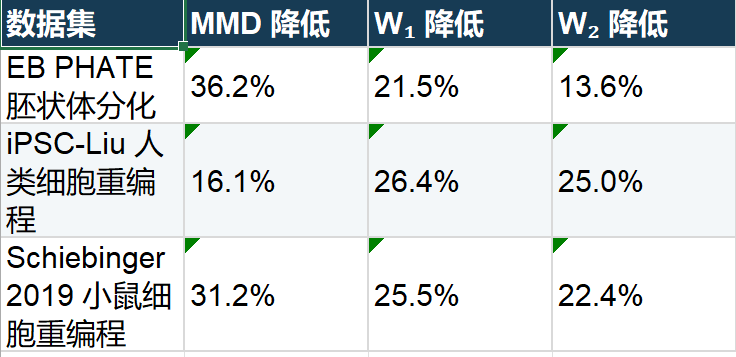
表中降幅按(最强基线误差 − PACE 误差)÷ 最强基线误差计算;比较口径为时间平均指标。
在更高维的表示中,PACE 在 iPSC-Liu 的 10 维和 50 维 PCA 表示上,三项时间平均指标也均领先;在两个 100 维多模态基准上,则在部分指标中取得最佳表现。
4.2 没有速度监督,学到的运动方向是否合理?
留出快照检验群体在某个时刻到了哪里,但接近的群体分布仍可能由不同速度场产生。论文进一步用未参与训练的 RNA velocity 参考,检验预测方向是否与额外的生物学信号相容。
在胚状体分化数据上,相对于最强基线,PACE 与 RNA velocity 参考之间的余弦距离从 0.4041 降至 0.3287,降低 18.7%;单位归一化速度的 L₂ 误差从 0.7542 降至 0.6630,降低 12.1%。两项相对误差降幅的平均值约为 15.4%。
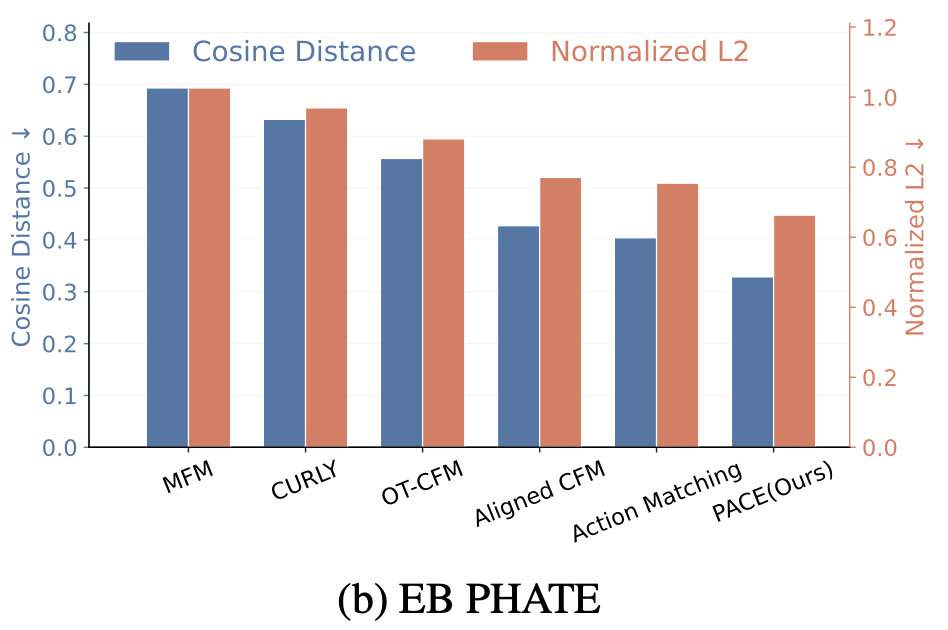
RNA velocity 仅用于评估。余弦距离和单位归一化后的 L₂ 误差均越低越好,主要反映方向一致性,不能据此确认真实单细胞轨迹。
哪些设计带来了改善?
我们进一步移除或简化模型中的关键组件,包括跨时间重新匹配、各向异性度量、局部邻域,以及空间和时间平滑。
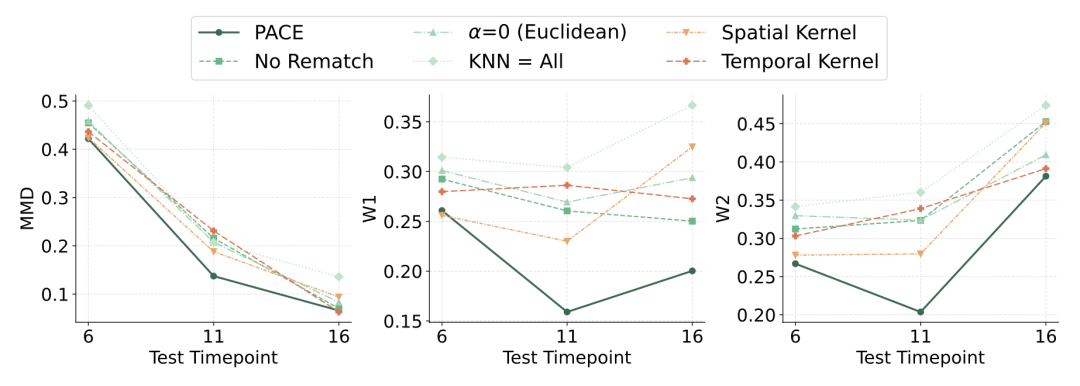
小鼠重编程数据上的消融结果。横轴为留出时间点,纵轴为分布重建误差,越低越好。
这些简化都会使至少一个时间点或指标退化,完整 PACE 在多项指标上表现更稳定。这表明,改善来自局部几何与对应关系更新的共同作用。
讨论:从动力学重建走向扰动模拟
PACE 利用局部几何约束细胞状态之间的连接与变化路径,从离散快照中重建连续的群体动力学。分布重建与速度方向评估,共同支持了这一思路在本文实验中的价值。
我们希望,这类方法未来能够帮助解释细胞动态过程,并支持扰动模拟。即使关注的是扰动后的静态终点,这一结果也是动态演化形成的。 要理解扰动如何改变细胞命运,并更可靠地预测不同条件下的响应,就需要尽可能刻画真实动力学,理解细胞沿什么路径、以怎样的速度到达最终状态。
当前,快照仍无法唯一确定真实细胞历史,几何先验也可能受到噪声和采样不足的影响。未来,我们希望结合时间分辨的扰动数据与独立实验,检验并完善动力学重建,进一步模拟扰动如何改变细胞的演化路径。
论文、代码、实验配置和使用教程已公开,欢迎交流与使用。
参考资料
Yu, Chenglei, et al. "PACE: Geometry-Aware Bridge Transport for Single-Cell Trajectory Inference." arXiv preprint arXiv:2605.18587 (2026).https://arxiv.org/abs/2605.18587
项目主页:
https://ai4science-westlakeu.github.io/PACE/
代码与教程:
https://github.com/AI4Science-WestlakeU/PACE
内容中包含的图片若涉及版权问题,请及时与我们联系删除


评论
沙发等你来抢