

生命活动发生在一个动态演变的分子世界中。细胞信号的传递、代谢反应的调控,都与蛋白质的构象变化及分子间的协同作用密切相关。 理解生命活动的微观基础,需要将生物分子的结构、多种构象及其相互作用联系起来,探索生物学功能如何依赖这些动态关系。
人工智能(AI)为探索生物分子的动态结构提供了新的计算方式。通过学习分子可能呈现的构象,以及这些构象如何随相互作用伙伴而改变,模型有望帮助我们理解生物分子的动态行为。 能够描述分子的多种状态及其对环境的响应,是迈向生物分子动态世界模型的重要一步。
围绕这一目标,临港实验室AI团队提出了 OriDynamics,一个面向蛋白质单体、蛋白–小分子和蛋白–蛋白复合物的统一全原子构象集合生成框架。通过 潜在集合分解(latent ensemble decomposition),OriDynamics 将广泛的构象探索与局部全原子采样相结合。在多项基准评估测试中,模型在构象覆盖、原子波动和相互作用几何等方面的多项指标优于微软的 BioEmu2 和其他主流模型。应用结果进一步展示了其 恢复蛋白的功能相关构象、刻画分子结合前后的构象变化,以及采样到配体解离过程的连续构象变化 的多项能力。
视频|OriDynamics 概览
方法基础:连接全局构象探索与局部原子波动
构建生物分子动态的世界模型,需要同时描述分子自身能够呈现的构象,以及阐述这些构象如何随相互作用分子而改变。挑战在于,这些动态变化还跨越不同空间尺度:既包括蛋白结构域重排等显著的构象变化,也包括同一状态附近的细微原子扰动,还需要考虑分子内和分子间的协同运动。OriDynamics 正是基于这些场景去开发,它的思路是通过潜在集合分解,将全局构象探索(exploration)与局部挖掘(exploitation)分层建模:先在紧凑的结构潜在空间中探索不同的代表构象,再围绕这些构象开展局部全原子采样。 这一分层设计兼顾构象状态的覆盖与各状态附近的原子细节,并通过以下三个模块衔接生成过程(图 1):
自编码器(AutoEncoder):学习紧凑的结构表示。 将全原子构象编码到潜在空间,并通过解码恢复原子坐标,为不同结构状态的生成提供表示基础。
潜在流模块(Flow Module):探索不同的代表构象。 通过流匹配学习潜在空间中的构象分布,从噪声出发生成新的潜在状态,再经自编码器解码得到全原子的代表构象。
精化模块(Refine Module):采样局部全原子变化。 以这些代表构象为条件,通过扩散模型产生局部构象集合,描述代表状态附近的原子波动。
在训练中,OriDynamics 利用 平均位置、波动幅度和联合坐标协方差 对整个生成构象集合进行监督,分别刻画原子的平均空间位置、波动的大小,以及不同原子位移之间的相关性。这些统计特征共同约束代表构象的生成与局部全原子采样,使分子内部及不同分子伙伴之间的协同变化成为模型学习的对象。
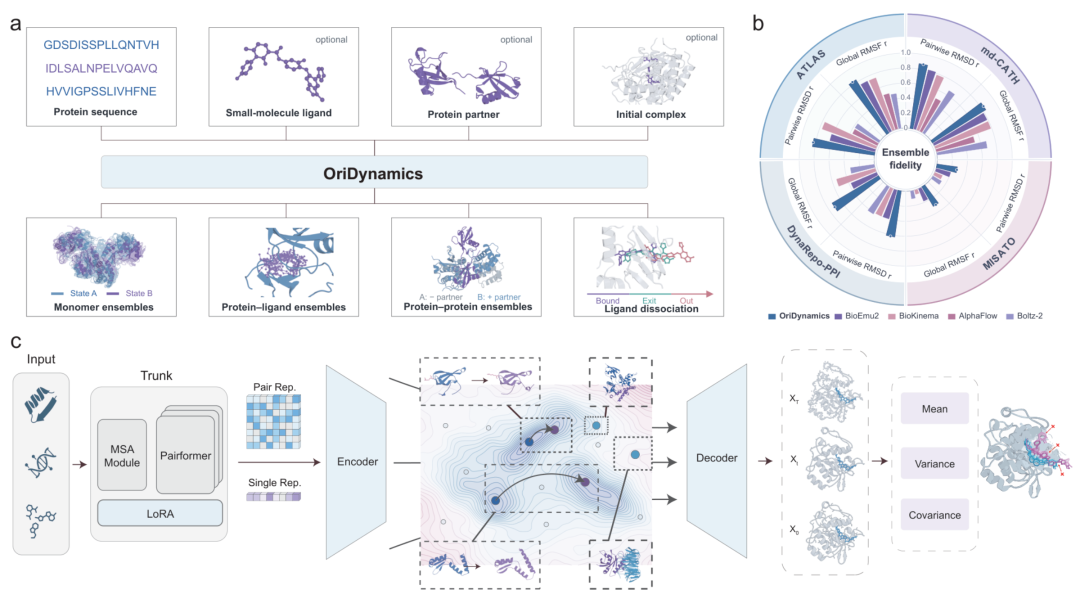
图 1|潜在构象探索、条件全原子采样与集合统计监督共同组成 OriDynamics 框架。(图源:OriDynamics 论文)
核心能力:从单体到复合物,刻画柔性与相互作用
对构象集合的检验,需要从整体变化幅度和局部柔性分布,进一步深入到分子间的接触关系。研究据此从蛋白质单体出发,扩展到蛋白–配体和蛋白–蛋白复合物,检验模型能否在更复杂的相互作用环境中保持这些能力。
蛋白质单体:恢复整体构象变化与分布。 在两项公开基准上,OriDynamics 的 Pairwise RMSD 相关性分别达到 0.834 和 0.870,均位居参评方法首位(图 2a、b)。这一指标比较不同目标的构象变化幅度,反映生成集合能否恢复参考 MD 中的整体柔性差异。进一步观察 6XRX,生成构象与参考 MD 呈现出相近的结构分布,回转半径分布的 W₁ 距离为 0.52 Å(图 2c)。总体比较与结构案例共同展示了模型对构象变化幅度和整体紧致程度的刻画能力。
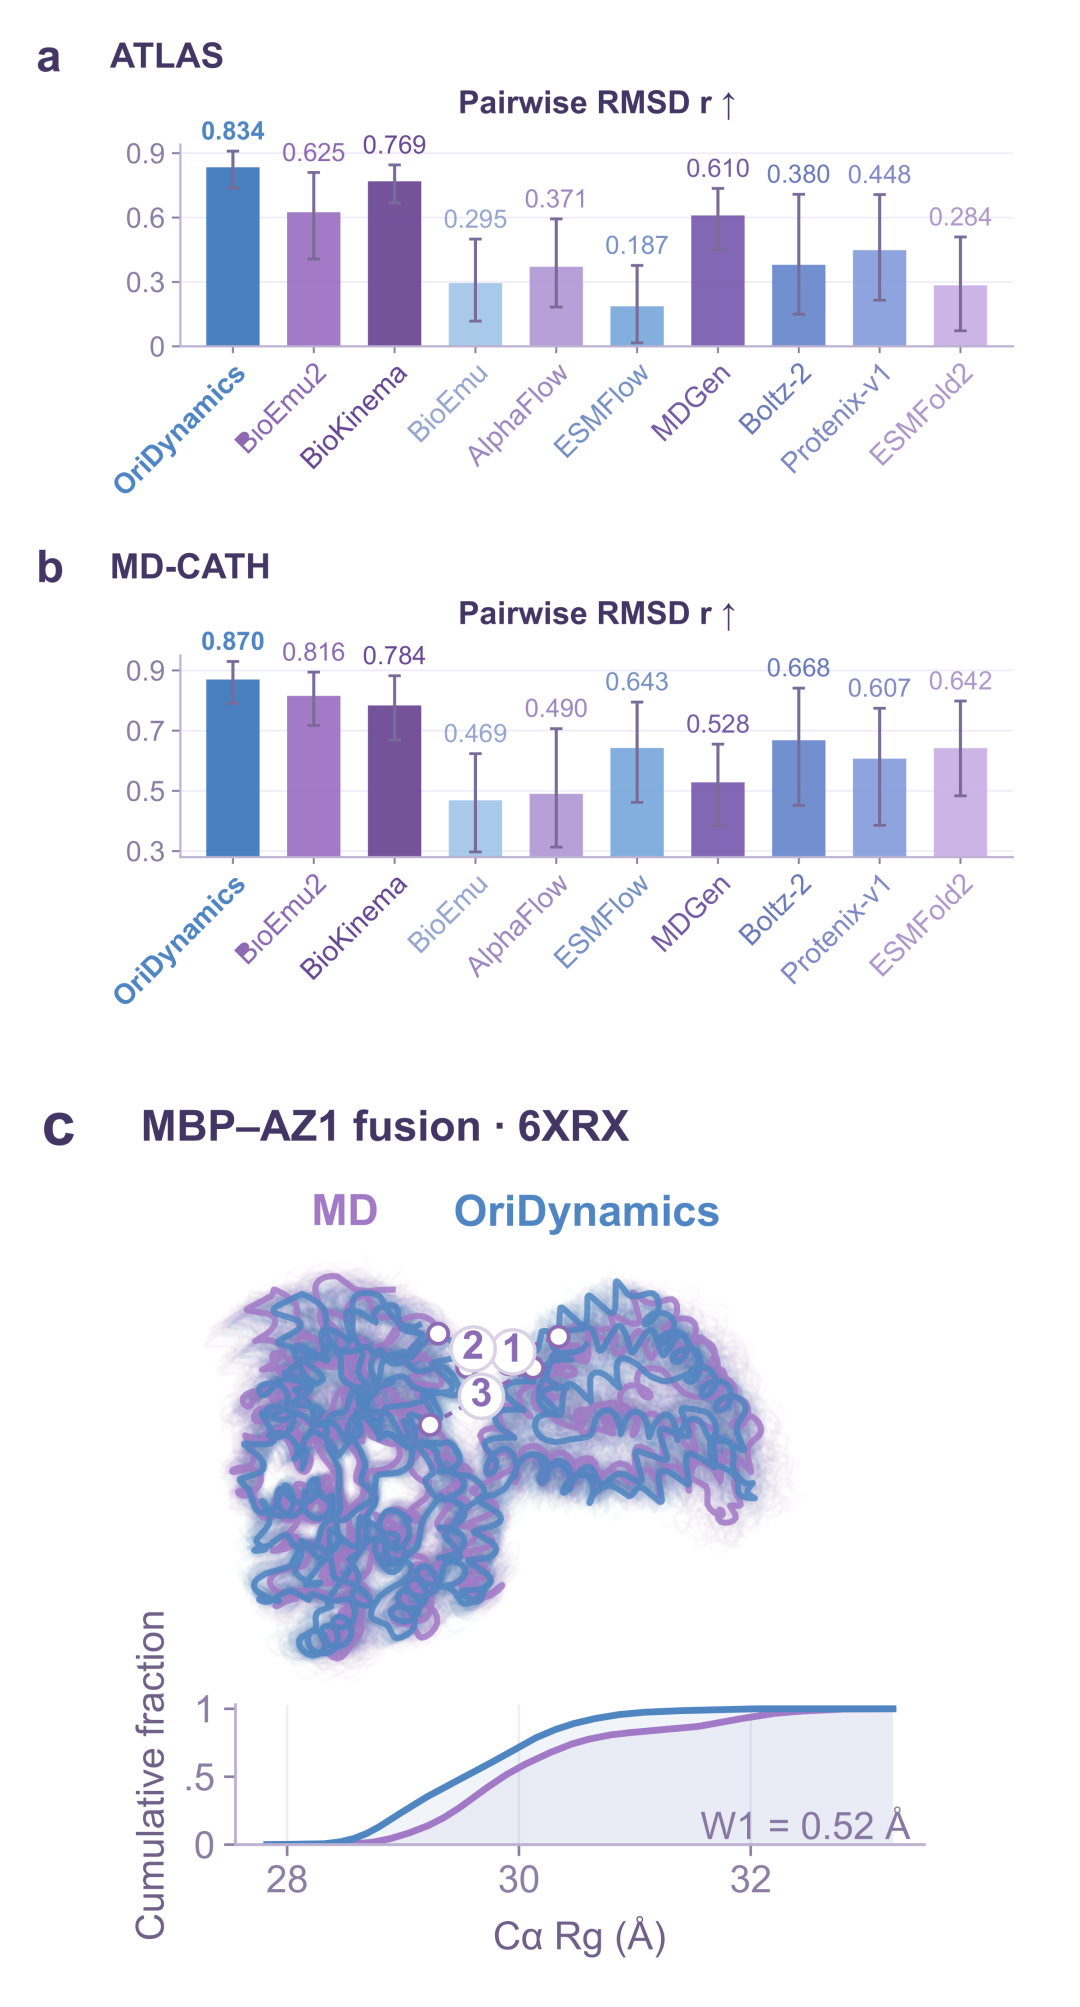
图 2|单体整体柔性与 6XRX 的结构及回转半径分布。(图源:OriDynamics 论文)
蛋白–配体复合物:刻画配体柔性与结合口袋的构象变化。 OriDynamics 的配体 Pairwise RMSD 相关性为 0.275,在参评方法中最高(图 3a),反映了模型对不同复合物中配体构象变化幅度的恢复能力。进一步观察 2XZG 结合口袋,结构叠合展示了参考 MD 与生成集合覆盖的局部构象,RMSF 曲线则比较了口袋原子的波动分布(图 3b)。从配体整体变化到口袋局部波动,这些结果展示了模型对结合环境中不同尺度结构变化的刻画。
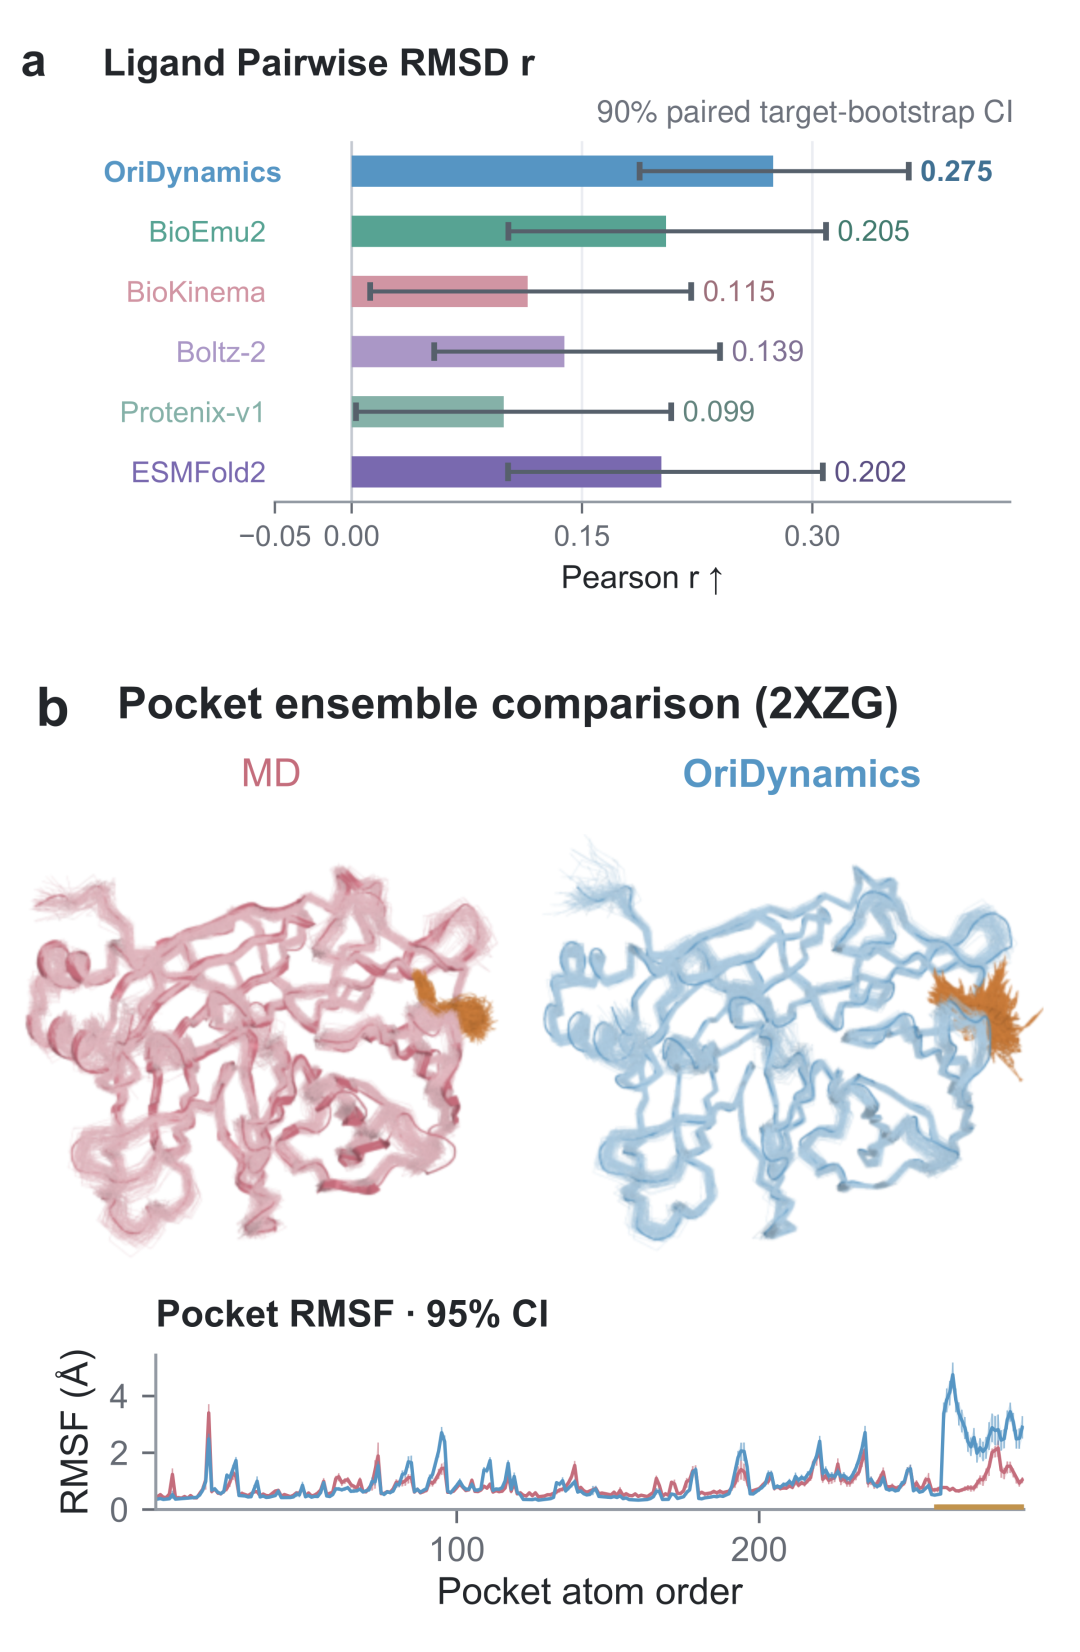
图 3|配体整体柔性与 2XZG 结合口袋的结构及原子波动。(图源:OriDynamics 论文)
蛋白–蛋白复合物:从整体构象变化深入到界面协同运动。 在完整复合物层面,OriDynamics 的 Pairwise RMSD 相关性达到 0.620,为参评方法中的最高值(图 4a)。进一步聚焦相互作用界面,在 A00C7 中,预测与 MD 共同识别出 19 个动态暴露残基,互信息矩阵也呈现出相近的协同变化(图 4b)。A00BU 的接触图进一步比较了链间瞬态接触与弱接触的分布(图 4c)。这些结果表明,模型能够刻画多链体系的整体构象变化,并在具体案例中恢复部分界面协同特征;接触图中的差异也显示,精确恢复具体接触重排仍有提升空间。
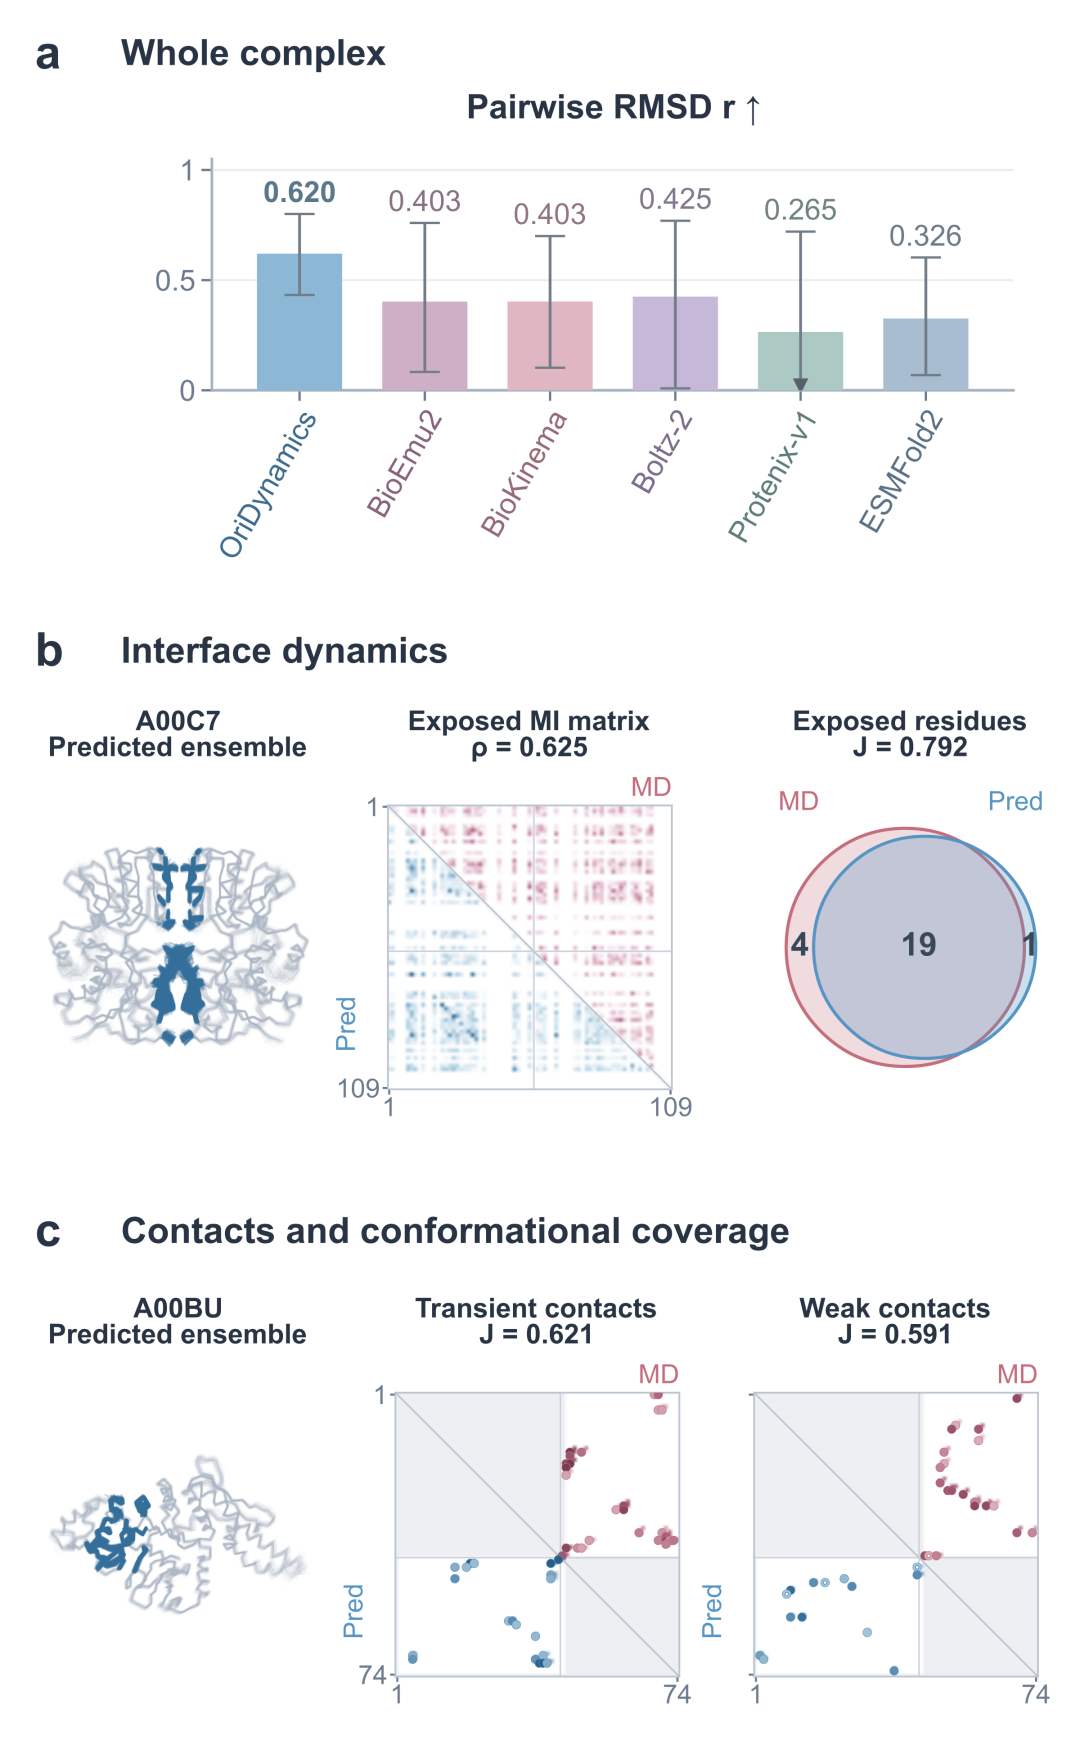
图 4|多链整体柔性及界面暴露、链间接触的结构案例。(图源:OriDynamics 论文)
应用探索:从状态覆盖到分子功能
总体表现:覆盖不同状态,响应相互作用环境
功能相关构象为集合生成提供了直接检验:生成构象集合能否覆盖同一分子的不同实验状态,并反映分子伙伴加入后的结构变化?在替代构象评估中,OriDynamics 以 TM-score 为判据的 双状态恢复成功率达到 64.8% ,高于 BioEmu 的 60.4% 和 BioEmu2 的 48.4%,在七种参评方法中位居首位(图 5a);在 RMSD 判据下也取得最高的整体成功率。这里的双状态恢复,要求同一目标的两个实验参考状态都被生成构象集合覆盖。
对于配体或蛋白伙伴加入后的结构响应,按照基准采用的 蛋白簇平均口径 ,OriDynamics 的双状态成功率为 54.7% ,高于 ESMFold2 的 46.9%(图 5b)。这一口径降低了样本较多的蛋白簇对总体比较的影响。两项评估共同显示,模型既能覆盖同一输入下的不同构象,也能在相互作用条件改变时恢复对应的未结合与结合状态。
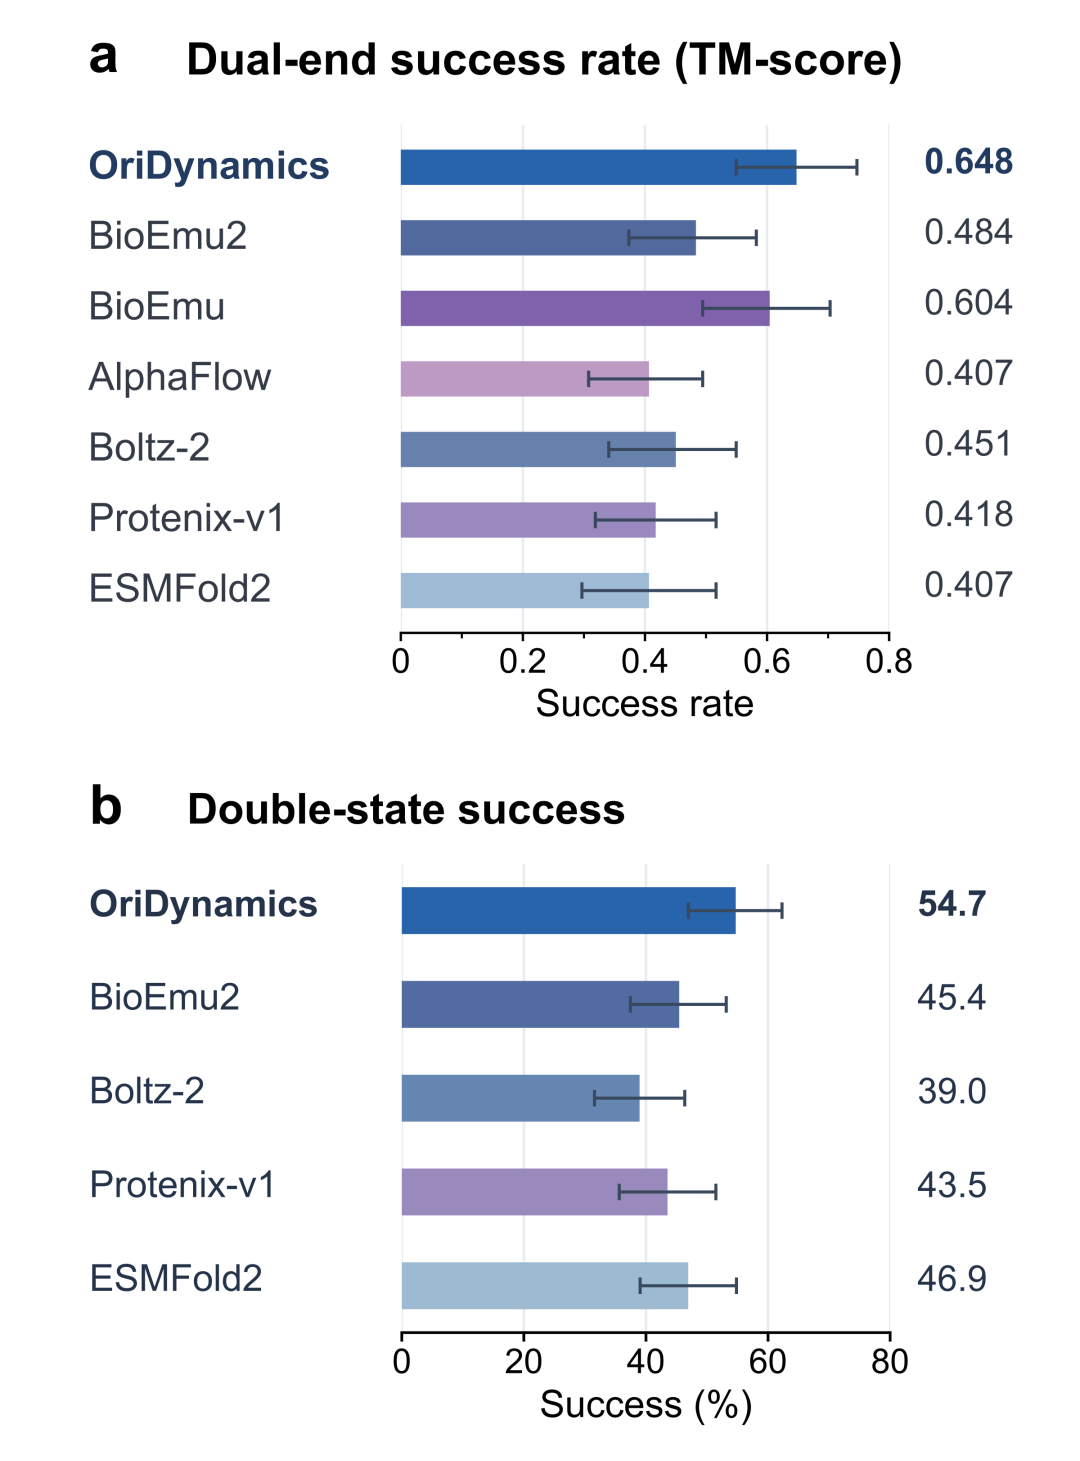
图 5|双状态恢复与分子伙伴响应的总体成功率。(图源:OriDynamics 论文)
从跨膜转运、催化裂隙开合到配体位置变化,以下三个案例进一步展示了生成构象集合与功能相关结构变化之间的联系。
案例一|BbFpn:跨膜转运中的交替开放
BbFpn 是铁转运蛋白 ferroportin 的细菌同源蛋白,其金属转运相关构象变化涉及跨膜螺旋和两个结构单元的相对重排,使中央腔体交替朝向膜内侧或外侧开放。OriDynamics 生成构象集合能够覆盖不同的腔体开放状态,并呈现相应的螺旋位移。
视频|跨膜螺旋重排与腔体交替开放。
案例二|BsPPase:结构域运动与催化裂隙开合
BsPPase 是枯草芽孢杆菌的无机焦磷酸酶,催化焦磷酸水解。其活性位点位于两个结构域之间,结构域的相对运动会改变催化裂隙的开放程度。OriDynamics 生成构象集合呈现了不同的结构域排列,为观察这一功能相关的开合运动提供了结构参照。
视频|结构域相对运动与催化裂隙开合。
案例三|FAK:配体位置变化与口袋接触
FAK(黏着斑激酶)参与细胞黏附相关的信号传递,其激酶口袋也是小分子抑制剂的重要结合位点。在该受体与配体 DD39 组成的体系中,OriDynamics 生成了配体处于不同相对位置的构象,呈现了配体位置改变及其与口袋接触关系的变化。
视频|FAK 的生成构象与参考 MD 对照。
从功能构象变化走向分子世界模型
从蛋白质单体的柔性,到复合物中的协同变化,再到不同功能状态与配体位置,OriDynamics 将这些问题纳入统一的构象集合生成框架。它所关注的,是 分子可以呈现哪些状态,以及这些状态如何依赖相互作用环境。
生物分子动态世界模型的长远目标,是将分子状态、相互作用和环境响应组织在统一的计算框架中,使研究者能够探索不同条件下的结构可能性、比较候选机制,并提出可由实验检验的假设。这样的模型有望为连接原子尺度的变化与生物学功能提供更丰富的研究工具。
向这一目标前进,需要持续融合物理知识、实验观测和更广泛的分子体系。未来,构象生成模型有望与科学推理和实验平台协同工作,让计算探索产生的线索进入实验检验,再以实验反馈更新模型,逐步形成贯通假设提出、分子建模与实验验证的研究过程。
OriDynamics 为这一方向提供了一个起点。随着对分子多种状态及其相互作用的建模不断深入,机制研究、药物发现和功能分子设计的探索空间有望进一步拓展。 以可检验的分子模型连接计算探索与真实生物学,为理解生命机制和设计分子功能提供更有力的工具,是这一研究方向的长远愿景。
参考资料
主页链接: https://lg-frontierai.github.io/homepage/oridynamics
论文链接: https://arxiv.org/abs/2611.11958
代码链接: https://github.com/LG-FrontierAI/oridynamics
内容中包含的图片若涉及版权问题,请及时与我们联系删除


评论
沙发等你来抢